دور BATF3 في التمايز Tu9 والأمراض المخاطية التي تحركها الخلايا التائية (الجزء 2)
Jun 13, 2022
لمعرفة المزيد من المعلومات الرجاء الاتصالdavid.wan@wecistanche.com
نقاش
تعتبر خلايا T # 9 مهمة لتطوير الأمراض الالتهابية والحساسية. ومع ذلك ، لا يزال برنامج النسخ والمحفزات الالتهابية التي تدفع تمايز خلايا TH9 غير مفهومة تمامًا. في هذه الدراسة ، حددنا السيتوكين TL1A المؤيد للالتهابات كمحفز قوي لتمايز الفئران والفئران T -9 وحددنا BATF3 كعامل نسخ مهم يشارك في تمايز خلايا TH9. تضمنت شبكة النسخ التي تم إحداثها بواسطة TL1A عوامل النسخ BATF و BATF3 والعديد من الجينات الخاضعة للتنظيم BATF (الشكل التكميلي 7). في الجسم الحي ، في تجارب النقل بالتبني ،Tμ 9- خلايا TL1Aكانت مؤيدة للالتهابات بشكل كبير مما يؤدي إلى التهاب الأمعاء والرئة. كان الميل المؤيد للالتهابات لخلايا TL1A -9- T يعتمد على إنتاج IL -9. أدت عمليات نقل خلايا Batf 3- / T و 9- TL1A إلى تقليل التهاب الغشاء المخاطي وتعبير السيتوكين في الجسم الحي.
على الرغم من أن خلايا Tμ9 قد تم تحديدها كمجموعة فرعية T-helper مميزة ، إلا أنه لم يتم تحديد عامل النسخ الذي يعمل كمنظم رئيسي أو يحدد النمط الظاهري TH9 فقط. بدلاً من ذلك ، تعمل العديد من عوامل النسخ بالتنسيق لتنظيم تمايز الخلايا T -9. وقد ثبت أن BATF يتعاون وظيفيًا مع IRF4 ويرتبط بالعناصر المركبة داخل مناطق المحفز للجينات المستجيبة. تم اقتراحه مؤخرًا كـ "عوامل رائدة" في تمايز خلايا Tp17 من خلال المساهمة في إمكانية الوصول الأولي للكروماتين وتسهيل الوصول إلى عوامل النسخ الأخرى. 36 لاحظنا أن TL1A له تأثير مباشر على تعبير BATF ويتآزر مع TGF {{9} } و IL -4 للحث على تعبير BATF إلى أقصى حد خاصة في وقت مبكر من تمايز TH9. لدعم هذه الفكرة ، يؤدي التحفيز باستخدام TL1A وحده إلى ربط BATF بمروج II9 بينما لا يكون له تأثير مباشر على ربط عوامل النسخ الأخرى (IRF4 و BATF3). لكن،TH 9- TL1Aتعزز الشروط تآزريًا ارتباط BATF3 و IRF4 ، بالإضافة إلى أستلة هيستون H3 ، وهو تعديل كروماتين متساهل يرتبط بنشاط المروج ll9. و IL -10 بموجب T ، 9 شروط .15 TL1A قادرة جزئيًا على الأقل على التغلب على متطلبات BATF في تحريض IL -9 و IL -13 على الأرجح من خلال تحسين النسخ الأخرى العوامل التي قد تكون قادرة على تعويض فقدان BATF. أحد المرشحين للحصول على تعويض وظيفي هو BATF3 الذي يتم إحداثه بشكل نسخي بواسطة TL1A. لقد تم اقتراح أن BATF و BATF3 قابلين للتبادل وظيفيًا لتطوير Tu17 و Tp2 ، كما أن زيادة التعبير عن BATF3 في BATF -'- T الخلايا يمكن أن تستعيد إنتاج IL -17 في خلايا TH17 و IL -4 و IL {{{ 23}} الإنتاج في خلايا T # 2. 18323738 ومع ذلك ، لم يتم تحديد دور BATF3 في تطوير الخلايا Tu في ظل الظروف الفسيولوجية والتفاعل المحتمل بين BATF و BATF3 أثناء تمايز TH9. نوضح هنا أن TL1A يسهل ربط BATF3 بالمروج ll9. كنتيجة وظيفية ، يساهم BATF3 في إنتاج IL -9 في ظل ظروف T -9 ، لا سيما في سياق تحفيز TL1A. من المثير للدهشة أن BATF3 يمكن الاستغناء عنه في التمايز المبكر لخلايا Tu9 ولكن قد يكون مطلوبًا لتحقيق الاستقرار أو الحفاظ على النمط الظاهري لـ TA9 وإفراز IL -9 في نقاط زمنية لاحقة. تتناقض النتائج التي توصلنا إليها حول دور BATF3 في تمايز TH9 مع التقارير السابقة عن إمكانية الاستغناء عن BATF3 في التمايز Tu1 و TA2 و Tu17. ليس مع سيتوكينات TH9 الأخرى مثل IL -10 و IL -13 ، مما يشير إلى أن BATF3 يرتبط على وجه التحديد بمروج ll9 ويحفز إفراز IL -9. هناك حاجة إلى مزيد من الدراسات لتحديد جينات مستهدفة إضافية لـ BATF3 أثناء تمايز TH9 ودورها في مجموعات فرعية أخرى من Tu.


انقر هنا لمعرفة المزيد عن Cistanche
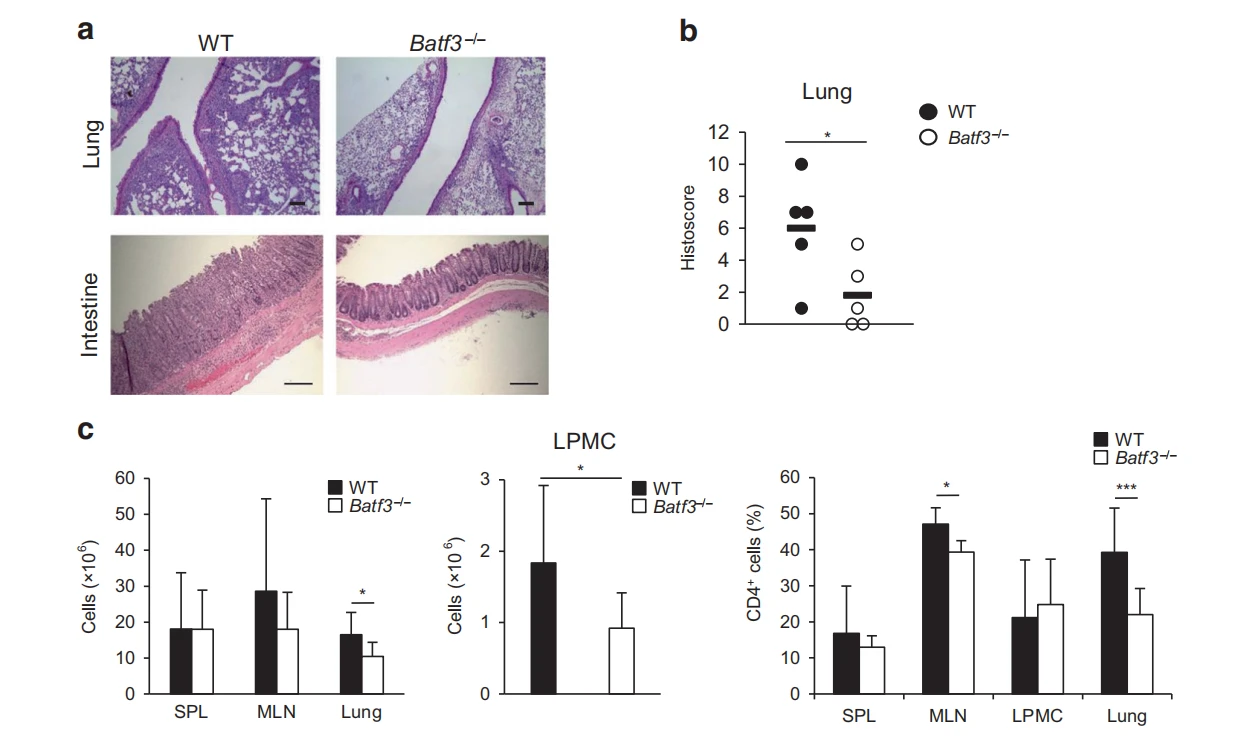
الشكل 7 يؤدي نقص Batf3 إلى تقليل التهاب الغشاء المخاطي الناتج عن خلايا TL1A TH 9-. تم تمييز الخلايا الساذجة WTor Batf 3- / خلايا في خلايا T _9- TL1A وحقنها في الفئران Rag 1-7. لطخات H&E التمثيلية للرئتين (الألواح العلوية) والأمعاء الغليظة (الألواح السفلية) شريط المقياس: 200 مم. ب درجات الأنسجة للرئتين. ج إجمالي عدد الخلايا (يسار ، وسط) ، تكرار خلايا CD4 * T (يمين). البيانات تمثل ± SD.n =10 / group.d تلطيخ داخل الخلايا لـ IL {{11} } و IL -13 و IL -17 من الطحال و MLN والرئتين بعد إعادة تنشيط الجسم الحي باستخدام PMA بالإضافة إلى lonomycin.Data تمثل الوسائل ± SD.n =5 / مجموعة. تم عرض تجربة تمثيلية واحدة من بين ثلاث تجارب مستقلة. * ص<0.05,><0.01 as="" determined="" by="" student's="">
على الرغم من وصف السيتوكينات أو الوسطاء الأخرى المؤيدة للالتهابات مثل IL -1 و OX40 و TSLP لتحسينتمايز TH9، يبدو أن TL1A فريد من نوعه في تنظيم BATF ، وبالتالي فتح الكروماتين لتوظيف عوامل النسخ الأخرى بما في ذلك BATF3.353940 بيانات تسلسل الحمض النووي الريبي الخاصة بنا تدعم هذا الاستنتاج الذي يحدد مجموعة فرعية من الجينات المعتمدة على BATF التي تم تنظيمها بشكل كبير بواسطة TL1A. علاوة على ذلك ، تكشف بيانات تسلسل الحمض النووي الريبي لدينا أن BATF3 ينظم نشاط عوامل النسخ وتكاثر الخلايا ونقل الإشارات داخل الخلايا مما يشير إلى دور مهم لـ BATF3 أثناء تمايز T # 9. في الجسم الحي ، أدت خلايا Batf 3- - TA 9- TL1A إلى تقليل التهاب الغشاء المخاطي وتعبير السيتوكين. لم نلاحظ ضعفًا في ترحيل خلايا Batf 3- - TH 9- TL1A إلى الأمعاء ، على عكس خلايا BATF -'- CD4 بالإضافة إلى الخلايا التائية التي تفشل في تنظيم علامات الهجرة المعوية ولا تفعل ذلك ملء الأمعاء. 'تدعم بياناتنا دور BATF3 في الوظيفة الفيزيولوجية المرضية لخلايا TA 9- TL1A.
ارتبطت خلايا IL {0}} و TA9 مؤخرًا بالتسبب في مرض التهاب الأمعاء. * -10 IL -9 بالإضافة إلى CD4 بالإضافة إلى الخلايا التائية تم إثرائها في المرضى الذين يعانون من UC ومستويات مصل عالية من IL {{ يرتبط 5}} بمرض حاد في مرضى القرص المضغوط. -10 في نموذج تجريبي لمرض يشبه UC الناجم عن الناشبة ، IL -9- و PU. 1- الفئران الناقصة محمية من الأمعاء تعتبر الأجسام المضادة للالتهاب ومضادات الإنترلوكين -9 وقائية في نموذج وقائي مزمن. درجة ومع ذلك ، لم نلاحظ أي تأثيرات لـ TL1A على تعبير PU.1 في ظل ظروف T9. لقد أظهرنا أن تحفيز TL1A ينتج عنه تنظيم BATF و BATF3 ولكن ليس PU.1 على الرغم من وصف PU.1 كمنظم رئيسي لتمايز TH9 ، إلا أنه مطلوب فقط للتعبير عن مجموعة فرعية من جينات TH9 والفئران اقتراح ربط PU.1 لم يتغير في استقلالية BATF الكاملة عن PU.1 و BATF. 75
لقد أوضحنا أن خلايا T ، 9- TL1A شديدة الإمراض في الجسم الحي وتسبب التهاب الأمعاء والرئة. التهاب معوي فيTH 9- TL1Aكان المتلقون محصورين بشكل أساسي في الأمعاء الدقيقة. علاوة على ذلك ، لاحظنا زيادة عدد خلايا CCR6 * و CD103 في مستلمي TH 9- TL1A في الجسم الحي. توضح هذه البيانات باستمرار أنه يتم التعبير عن المستقبل الكيميائي CCR6 والإنتجرين CD103 على خلايا TH9 وتسهيل الانتقال إلى المواقع الالتهابية والأسطح المخاطية. بما يتوافق مع ملاحظتنا للالتهاب المعوي الدقيق بشكل أساسي منذ أن ثبت أن محور CCR6 / CCL20 يسهل على وجه التحديد هجرة الخلايا التائية ، 17 خلية إلى الأمعاء الدقيقة ومن المعقول أن تنطبق آليات مماثلة على خلايا Tμ9. مع النتائج الحديثة لارتفاع مستويات مصل IL -9 في مرضى القرص المضغوط ، خاصةً المصابين بأمراض خطيرة.؟
يعزز TL1A التمايز T و 1 و TH2 و TA17 وعلى الرغم من أننا لم نر أي مؤشر على حدوث تحول عالمي من خلايا T9 إلى مجموعات فرعية أخرى من TH في المختبر ، إلا أنه قد يشير إلى أن خلايا TH9 المتمايزة مع TL1A قد تكون غير مستقرة في الجسم الحي و -التمييز "في مجموعات فرعية أخرى. كانت إمكانية التمايز العابر لخلايا TH9 مثيرة للجدل وقد تعتمد على السياق ونموذج المرض والحالة المناعية للمضيف. في EAE ، يحدث التمايز العابر لـ TH9 إلى الخلايا المنتجة لـ IFN-Y ، ومع ذلك ، يبدو أن النمط الظاهري T ، 9 يبدو مستقرًا في نماذج السرطان. 339 من المدهش أن خلايا TL1A في الجسم الحي T 9- استمرت في إنتاج IL { {18}} والسيتوكينات النهائية مثل IL -17 و IL -13 ولم تنتقل عبر التمايز. تدعم هذه الفكرة أيضًا بياناتنا التي توضح أن العلاج المضاد للـ LL -9 وحده كافٍ لمنع التأثيرات المسببة للأمراض لخلايا TL1A 9-. أدى العلاج المضاد للليل -9 وحده إلى خفض إنتاج الإنترلوكين -13 وإضعاف التهاب الأمعاء والرئة إلى مستويات TH9. يتطلب تطور التهاب الرئة التحسسي تكوين خلايا TH2 و TH9. ومع ذلك ، يبدو أن نموذجنا الخاص بالتهاب الرئة المزمن غير التحسسي مدفوع أساسًا بإنتاج خلايا T.9 من IL -9- ، على الرغم من أننا لا نستطيع استبعاد مساهمة IL -9- في إنتاج الخلايا غير التائية في التسبب في المرض في نموذج.
باختصار ، يعد TL1A محفزًا قويًا للتمايز بين الفئران والفئران T9 وقد أوضحنا مسارات الإشارة المعنية. نظرًا للخصائص المسببة للالتهابات لخلية TH 9- TL1A في الجسم الحي ، فإن استهداف محور TL1A-BATF 3- IL -9 قد يكون نهجًا علاجيًا واعدًا في 19- الأمراض المدفوعة مثل مرض التهاب الأمعاء أو أمراض الرئة التحسسية.

طُرق
الفئران C57BL / 6 ، C57BL / 6 Rag 1- / ، B6.SJL-Ptprc "Pepc / BoyJ (CD45.1) ، (B6.Cg-Nfkb1 * m13 0 l / J) ، Stat 6- / - (B6.129S2 (C) -Stat6 "miGr" / J) ، p 50- / - B6.Cg-Tg (TcraTcrb) 425Cbn / (OT-I) ، Batrf / ( تم شراء الفئران B6.129s-Batm1.1kmm /) و Bat 3- / (B6.129 S (C) -Batf3m1km "/) من مختبر جاكسون. تم وصف الدكتور 3- / - n الفئران في مكان آخر ، وتم الحفاظ على 4 الفئران في ظل ظروف SPF. تمت الموافقة على جميع الدراسات التي أجريت على الحيوانات من قبل لجنة رعاية واستخدام الحيوان بمركز Cedars-Sinai الطبي. تم عزل عزل الخلايا التائية والتمايز عن الخلايا التائية الساذجة (CD62LhichcD44'o "CD25 ~ ؛ استنساخ MEL -14 ، IM7 ، PC61.5 ؛ eBioscience) من الطحال و MLN باستخدام EasySeptM Mouse CD4 بالإضافة إلى مجموعة العزل (الخلية الجذعية Technologies) متبوعًا بفرز الخلايا (MoFlo ، Beckman Coulter). تمت زراعة الخلايا في وسط RPMI -1640 (10 بالمائة FBS) بمضادات CD3s (145-2 C11 ؛ BD Biosciences) ، مضاد CD28 (37.51 ؛ eBioscience) (شروط TH0) ، و TL1A الفئران (100 نانوغرام / مل ؛ R&D Systems) وفقًا لشروط T -9 (TGF البشري - 1 [3 نانوغرام / مل] ، Biolegend ، IL {{66} } [20 نانوغرام / مل ، PeproTech). بعد يومين ، تمت إضافة IL -2 (20 وحدة / مل). لتقييم تكاثر الخلايا ، تم تصنيف الخلايا المصنفة باستخدام carboxyfluorescein succinimidyl ester (CFSE ؛ Invitrogen) ، متمايزة لمدة 5 أيام ، وتم تقييم تخفيف CFSE عن طريق قياس التدفق الخلوي. لتقييم التمايز T الخاص بالمستضد ، تم تحفيز خلايا CD4 بالإضافة إلى الخلايا التائية الساذجة من الفئران OT-Il لمدة 3 أيام باستخدام 1 ميكروغرام / مل من OVA ؛ 23-339 ببتيد في وجود ناقلات الجنود المدرعة المتزامنة (نسبة 1: 3) تم تحضيره عن طريق استنفاد خلايا CD90.2T من الخلايا الطحالية (تقنيات الخلايا الجذعية) متبوعًا بعلاج ميتوميسين سي. تم الحصول على عزل خلايا CD4 + T البشرية والتمايز من متطوعين أصحاء بعد الموافقة المستنيرة وفقًا للإجراءات التي وضعها مجلس المراجعة المؤسسية Cedars-Sinai (IRB # 3358 ، 2673). تم عزل خلايا CD4 بالإضافة إلى T الساذجة (CD4 plus CD 25- CD45RA plus CD45RO7) من PBMC باستخدام مجموعة إثراء الخلايا EasySepl Human CD4 T (تقنية الخلايا الجذعية) متبوعة بفرز الخلايا. تمت زراعة الخلايا بمضاد CD3 (5 ميكروغرام / مل ومضاد CD28 2 ميكروغرام / مل باستخدام TL1A بشري (100 نانوغرام / مل ؛ فيتزجيرالد) تحت ظروف TH9 (TGF البشري - 1 [5 نانوغرام / مل] ، IL البشري -4 [10 نانوغرام / مل]). تم تقييم تركيز ELISA Cytokine في المستنبتات الطافية بواسطة ELISA من أجل الفئران أو IL -9 و IL -10 و IL -13 (eBioscience). تمت إعادة تنشيط خلايا التلوين داخل الخلايا باستخدام 50 نانوغرام / مل من PMA (phorbol 12- myristate 13- acetate) ، و 500 ng / ml ionomycin ، و monensin (eBioscience) لمدة 4 ساعات ، ملطخة بمضاد CD4 (RM {{ 117}} ، eBioscience) ، ثابت ومنفصل باستخدام مجموعة عازلة التلوين FoxP3 (eBioscience) ، وملطخة بالأجسام المضادة ضد IL الفأر -9 (RM9A4 ، BioLegend) ، IL -10 (JES {{123} } E3) ، IL -13 (13A) ، IL -17 A (eBio17B7) ، IL -17 F (eBio18F10) ، IFN-y (XMG1.2) ، IL {{136} } (BVD 6-24 G2) ، IL -22 (1H8PWSR) ، Ki67 (SolA15) ، BATF (MBM7C7) ، IRF4 (3E4) ، IL البشري -9 (MH9A4 ، جميع eBioscience) ، و BATF3 (841792 ، أنظمة البحث والتطوير). تم تحليل العينات باستخدام مقياس التدفق الخلوي CyAnADP (Dako Cytomation) وبرنامج FlowJo (TreeStar Inc.).
RT-PCR الكمي
تم عزل إجمالي الحمض النووي الريبي باستخدام مجموعات RNeasy وتم نسخه عكسيًا إلى cDNA باستخدام مجموعة Omniscript RT (كلاهما Qiagen). تم إجراء qPCR باستخدام نظام Mastercycler "ep realplex² System (Eppendorf). تستخدم لـ Actb ، I9 ، I10 ، 13 ، و BATF IDT) الجدول التكميلي 7). RT² SYBR "تم استخدام Green qPCR Mastermix (Qiagen) ومجموعات التمهيدي لـ Actb و Batf3 (IDT). تم تطبيع تعبير mRNA للجينات المستهدفة للتعبير عن Actb. تم حساب التعبير الجيني النسبي بالطريقة.

2- الترسيب المناعي لكروماتين AACt
تم إجراء كلوي باستخدام مجموعة الترسيب المناعي للكروماتين EZ ChIP (Millipore) متبوعًا بتحليل qPCR. إجمالاً ، تم تحفيز خلايا 1 × 10 درجة ، وتثبيتها ، وصوتها ، وتثبيتها مناعياً باستخدام 2ug من الأجسام المضادة من فئة ChIP: anti-BATF (sc -100974) ، anti-BATF3 (sc -162246) ، فأر عادي lgG (sc -2025) ، anti-IRF4 (sc -6059) ، الماعز العادي lgG (sc -2028) (جميع التقنيات الحيوية في Santa Cruz) ، anti-acetyl-histone H3 ({{17 }}) والأرنب العادي lgG (ملي مسام). كان الحمض النووي المرتبط بالمناعة عكسيًا متصالبًا ، ومنقى باستخدام أعمدة الدوران ، وتم تحليله بواسطة qPCR (تسلسل التمهيدي: الجدول التكميلي 7). لقياس الحمض النووي المتسرب مناعيًا ، أنشأنا منحنىًا قياسيًا من التخفيفات التسلسلية للدنا المدخلات. يتم تقديم البيانات كنسبة مئوية من إدخال DNA بناءً على التطبيع مقابل كمية إدخال DNA.
تسلسل الحمض النووي الريبي (أرقام الانضمام إلى GEO: GSE60362 و GSE106926)
تم استخدام RNA-Seg منخفض المدخلات (TH9 مقابل TH 9- TL1A): تم استخدام مجموعة RNA منخفضة المدخلات من Clontech's SMARTer Ultra "لتسلسل الإصدار 3 لإنشاء مكتبات cDNA مزدوجة تقطعت بهم السبل من 1.5 إلى 2.5 نانوغرام من إجمالي الحمض النووي الريبي من كل عينة وفقًا لتوصيات الشركة الصانعة. تم تجزئة مكتبات cDNA المزدوجة التي تقطعت بهم السبل بشكل فردي وربطها باستخدام محولات الرمز الشريطي lon Torrent lon Xpress باستخدام مجموعة مكتبة Lon Xpress "Plus Fragment Library Kit مع تعديلات محدودة بما في ذلك المكتبات النهائية المحددة الحجم مع تنظيف مزدوج الخرز وحجم V من محولات الأيونات.تم تقييم مكتبات RNA-Seq للتركيز والطول باستخدام مجموعة مقايسة QubitdsDNA HS و Agilent من Invitrogenطقم DNA عالي الحساسية, respectively. Samples were multiplexed to obtain >10 مليون قراءة لكل تسلسل. تم تضخيم المكتبات المجمعة على lon Sphere "وتسلسلها باستخدام Lon PIM Sequencing 200 Kit v2، lon Torrent".
مرنا- سيج (WT vs.Baft3-7T,9-TL1A): Illumina TruSeq Stranded mRNA library preparation kit was employed for RNA-Seq. Of total RNA, 1 ug per sample was used for poly-A mRNA selection using streptavidin-coated magnetic beads. cDNA was synthesized from enriched and fragmented RNA using reverse transcriptase (Super-Script ll, Invitrogen) and random primers. The cDNA was converted into double-stranded DNA, and enriched with PCR for library preparation. The PCR-amplified library was purified using Agencourt AMPure XP beads(Beckman Coulter). The concentration of the amplified library was measured with a NanoDrop spectrophotometer and on an Agilent 2100 Bioanalyzer. Samples were multiplexed to obtain >20 مليون قراءة / عينة ومتسلسلة على منصة NextSeq 500 (Illumina) باستخدام التسلسل أحادي الطرف 75- bp.
تحليل البيانات. تمت تصفية القراءات الأولية وتقليصها بواسطة مجموعة أدوات FASTX (http://hannonlab.cshl.edu/fastx{{0}}toolkit/) ومحاذاة باستخدام الإصدار 2 من Tophat. 0. 8 مع UCSC GRCm38 / mm1 0 تعليق توضيحي للجينوم المرجعي للماوس (http://genome.ucsc.edu). تم إنشاء عدد قراءة الجينات باستخدام HTSeq (v0.5.4) ثم تم تطبيعه بواسطة المتوسط المشذب لطريقة تطبيع القيم M مع edgeR (v3.0.8) في موصل حيوي في R (الإصدار 2.15) ، والذي يستخدم متوسطًا مرجحًا مشذبًا لـ نسب تعبير السجل. بالنسبة لجميع التحليلات ، تم استخدام إشارات الجودة فقط (العتبة: عشرة أعداد لكل مليون في اثنتين على الأقل من أربع عينات). تم إجراء تحليل غير خاضع للإشراف باستخدام أفضل 100 جينة مرتبة حسب النطاق الرباعي ثم تم إنشاء المجموعات الهرمية باستخدام (v2.11) باستخدام ارتباطات بيرسون ثنائية الاتجاه لتصور أنماط التعبير الجيني المنتشرة غير المتحيزة. تم استخدام التحليل الخاضع للإشراف باستخدام اختبار Fisher الدقيق المعدل في edgeR وخفض معدل الاكتشاف الخاطئ بنسبة 10 بالمائة باستخدام إجراء Benjamini و Hochberg لتحديد التعبيرات التفاضلية بين TH9 و T. 9- TL1A أو WT و Batf {{23} } T ، 9- TL1A. تم إجراء تحليل إثراء المسار باستخدام DAVID6.7 (http://david.abcc.ncifcrf.gov/) مع عتبة العد القديمة =5 وعتبة درجة السهولة =0. 05.
نموذج نقل الخلايا التائية
تم تمييز الخلايا التائية CD4 بالإضافة إلى CD62LighcD44 "cD 25- من الفئران CD45.1 إلى T9 أو T ، 9- خلايا TL1A لمدة 3 أيام. ذكر Rag {{1 {11}}}} / الفئران المستقبلة تم حقن الفئران بـ 0.5 × 10 درجة TH9 أو TH 9- من خلايا TL1A. تم وزن الفئران لمدة 6-8 أسبوع. بالنسبة لتجارب التعادل ، تم حقن الفئران بمضاد IL -9 أو تحكم lgG2b جسم مضاد (50 ميكروغرام / جرعة ؛ أنظمة البحث والتطوير) ثلاث مرات في الأسبوع لمدة 4 أسابيع ومرتين في الأسبوع للوقت المتبقي بدءًا من يوم نقل الخلايا التائية.كانت الأنسجة مثبتة بالفورمالين ومدمجة بالبارافين وملطخة بـ H&E أو AB-PAS. تم تسجيل الالتهاب من خلال نظام التسجيل شبه الكمي بواسطة أخصائي علم أمراض مدرب أعمى عن الظروف التجريبية ، تم عزل 45،46 LPMC من الأمعاء الغليظة كما هو موضح سابقًا. تم هضم أنسجة الرئة لمدة 45 دقيقة عند 37 درجة مئوية مع 10 مل من HBSS تحتوي على 15 ميكروغرام / مل Liberase "Roche) و 25ug / ml DNase I (Sigma وتصفية من خلال مصفاة خلية 40- ميكرومتر متبوعة بتحلل خلايا الدم الحمراء. كانت المعلقات أحادية الخلية ملطخة بمضادات CD4 ، و anti-CD45.1 (A20) ، و anti-CCR6 (29-2 L17) ، و anti-CD103 (2E7 ، all eBioscience) ، و anti-Ki {{52 }} (SolA15، BD PharMingen) لقياس التدفق الخلوي أو إعادة تحفيزها بأجسام مضادة لـ CD3c / anti-CD28 لمدة 3 أيام. تم قياس مستويات السيتوكين في المواد الطافية بواسطة ELISA.
إحصائيات
تم حساب الدلالة الإحصائية باستخدام برنامج SPSS (IBM SPSS Statistics 20 ، IBM Machines Corp. ، Armonk ، NY ، الولايات المتحدة الأمريكية). تم تحليل البيانات باستخدام تحليل التباين أحادي الاتجاه (ANOVA) متبوعًا باختبار الطالب غير المخصص ثنائي الذيل ، أو اختبار Mann-Whitney U كما هو محدد. اعتبرت الاختلافات كبيرة في p<>
شكر وتقدير
تم دعم هذا العمل من قبل المعاهد الوطنية للصحة (DK056328 إلى SRT) ومؤسسة F. Widjaja (SRT و KSM). أنيتا فيبسيج نيوتسكي وولف تلقت زمالات ما بعد الدكتوراه من مؤسسة كارلسبرغ (الدنمارك) ومؤسسة لوندبيك (الدنمارك). حصل جوردان نونيلي على جائزة أبحاث الطلاب من مؤسسة كرون وكوليتيس الأمريكية. يحظى بنك Cedars-Sinai MIRIAD IBD الحيوي بدعم من مؤسسة F.
الكاتب الاشتراكات
MT و HH و LT و MW و BS و MW و BS و MW و JN و JS و AN-W و RB و YW و JT و VF و KM. أجريت تجارب لتحليل البيانات ومراجعة نقدية للمخطوطة. أجرى AP و J. T و YW تحليل بيانات RNA-Seq. صممت MT و ST و KM التجارب. كتب MT و KM المخطوطة.
معلومات إضافية
تحتوي النسخة الإلكترونية من هذه المقالة (https://doi.org/10.1038/s41385-018-0122-4) على مواد تكميلية متاحة للمستخدمين المصرح لهم.
تضارب المصالح: يعلن المؤلفون عدم تضارب المصالح.
ملاحظة الناشر: تظل Springer Nature محايدة فيما يتعلق بالمطالبات القضائية في الخرائط المنشورة والانتماءات المؤسسية.

المراجع
1. Dardalhon، V. et al. يمنع IL -4 خلايا Foxp3 المستحثة بـ TGF-beta بالإضافة إلى الخلايا التائية معًا
باستخدام TGF-beta ، يولد IL -9 بالإضافة إلى IL -10 بالإضافة إلى Foxp3 (-) خلايا T المستجيبة. نات. إمونول. 9 ، 1347-1355 (2008).
2. Veldhoen، M. et al. تحويل عامل النمو بيتا "يعيد برمجة" الاختلاف-
بدء الخلايا التائية المساعدة 2 ويعزز مجموعة فرعية تنتج الإنترلوكين 9-. نات. Immunol.9 ، 1341-1346 (2008).
3. Jager، A، Dardalhon، V، Sobel، RA، Bettelli، E. & Kuchroo، VK Th1، Th17، Th9
تحفز الخلايا المستجيبة التهاب الدماغ والنخاع المناعي الذاتي التجريبي ذي الأنماط الظاهرية المرضية المختلفة. J.Immunol.183 ، 7169-7177 (2009).
4. Licona-Limon، P. et al. تحرك خلايا Th9 مناعة المضيف ضد الجهاز الهضمي
عدوى الديدان. الحصانة 39 ، 744-757 (2013).
5. Purwar، R. وآخرون. مناعة الورم القوية للورم الميلاني تتوسطها إنترلوكين -9-
إنتاج الخلايا التائية. نات. ميد. 18 ، 1248-1253 (2012).
6. جيرلاش ، ك وآخرون. خلايا TH9 التي تعبر عن عامل النسخ PU.1 محرك الخلية التائية-
التهاب القولون بوساطة عبر إشارات مستقبلات IL -9 في الخلايا الظهارية المعوية. Nat Immunol.15 ، 676-686 (2014).
7. Nalleweg، N. et al. يشارك IL -9 ومستقبلاته بشكل أساسي في
التسبب في جامعة كاليفورنيا. Gut.64 ، 743-755 (2015).
8. فينج ، ت. وآخرون. تتنبأ مستويات انترلوكين المصل 9 بشدة المرض والسريرية
فعالية إنفليكسيماب في المرضى الذين يعانون من مرض كرون. التهاب. ديس الأمعاء. 23 ، 1817-1824 (2017).
9. Matusiewicz، M.، Neubauer، K، Bednarz-Misa، I، Gorska، S. & Krzystek-Korpacka، M.
الإنترلوكين الجهازي -9 في مرض التهاب الأمعاء: يرتبط بالتئام الغشاء المخاطي في التهاب القولون التقرحي. العالم J. Gastroenterol. 23 ، 4039-4046 (2017).
10. المدعى عليه ، سي وآخرون. أهمية مستويات المصل الثاني -9 في الأمعاء الالتهابية
مرض. كثافة العمليات ياء إمونوباثول. فارماكول. 28 ، 569-575 (2015).
11. جاش ، إيه وآخرون. العامل النووي للخلايا التائية المنشطة 1 (NFAT1) الناجم عن السماح
يسهل تعديل الكروماتين معاملات إنترلوكين بوساطة عامل kappaB النووي (NF-kappaB) -9 (IL -9). J. بيول. تشيم. 287 ، 15445-15457 (2012). 12. Staudt، V.et al. العامل التنظيمي للإنترفيرون 4 ضروري للنمو
برنامج T helper 9 خلايا. الحصانة 33 ، 192-202 (2010).
13. Goswami، R. et al. تنظيم معتمد على STAT 6- لتطوير Th9.J. إمونول.
188,968-975(2012).
14. تشانغ ، HCet آل. مطلوب عامل النسخ PU.1 لتطوير
-9- إنتاج الخلايا التائية والالتهاب التحسسي. نات. إمونول. 11 ، 527-534 (2010).
15. جابين ، ر. وآخرون. يتطلب تطوير خلية Th9 نسخة من BATF تنظمها BATF
شبكة الاتصال. J. كلين. يستثمر. 123 ، 4641-4653 (2013).
16. كابلان ، MH شبكة عامل النسخ في خلايا Th9. سيمين. إمونوباثول.
39,11-20(2017).
17. Echlin، DR، Tae، HJ، Mitin، N. & Taparowsky، EJB-ATF يعمل كسلبي
منظم AP -1 النسخ الوسيط ويمنع التحول الخلوي بواسطة Ras و Fos. Oncogene 19 ، 1752-1763 (2000).
18. Murphy، TL، Tussiwand، R. & Murphy، KM Specificity من خلال التعاون:
تتحكم تفاعلات BATF-IRF في شبكات تنظيم المناعة. نات. القس إمونول. 13 ، 499-509 (2013).
19. Sopel، N.، Graser، A.، Mousset، S. & Finotto، S. The transcription factor BATF
يعدل الاستجابات بوساطة السيتوكين في الخلايا التائية. عامل نمو السيتوكين Rev.30 ، 39-45 (2016).
20. Edelson، BT et al. تشكل الخلايا التغصنية الطرفية CD103 (زائد) مجموعة فرعية موحدة
مرتبط من الناحية التنموية بـ CD8 alpha (زائد) الخلايا المتغصنة التقليدية. إكسب. ميد. 207 ، 823-836 (2010).
21. هيلدنر ك وآخرون. يكشف نقص Batf3 عن دور حاسم لـ CD8alpha - شجيري
الخلايا في مناعة الخلايا التائية السامة للخلايا. Science 322، 1097-1100 (2008).
22. Meylan، F. et al. يعتبر مستقبل عائلة TNF DR3 ضروريًا للخلايا التائية المتنوعة-
الأمراض الالتهابية بوساطة. حصانة 29 ، 79-89 (2008).
23. Fang، L، Adkins، B، Deyev، V. & Podack، ER الدور الأساسي لمستقبل TNF
الأسرة الفائقة 25 (TNFRSF25) في تطور التهاب الرئة التحسسي. ياء Exp.Med.205 ، 1037-1048 (2008).
24. بابو ، بي بي وآخرون. ينظم تفاعل TL1A-DR3 وظيفة خلية Th17 و 17-
أمراض المناعة الذاتية بوساطة. ياء إكسب. ميد. 205 ، 1049-1062 (2008).
25. Bull، MJ et al. يحرك مسار مستقبل الموت 3- مسار البروتين الشبيه بـ TNF 1A
أمراض العظام الضائرة في التهاب المفاصل الالتهابي. إكسب. 205 ، 2457-2464 (2008).
26. Thomas، LS et al. يتسبب عضو عائلة TNF TL1A في إفراز IL -22 في
التزمت خلايا Th17 البشرية عبر الاستقراء IL -9. J. ليوكوك. بيول. 101 ، 727-737 (2017).
27. ريتشارد ، ACet al. يقوم رابط عائلة TNF TL1A ومستقبله DR3 بتعزيز T.
أمراض المناعة التحسسية الخلوية عن طريق تعزيز التمايز والإمراضية لـ IL -9- إنتاج الخلايا التائية.J.Immunol.194 ، 3567-3582 (2015). 28. تان ، سي وآخرون. تُظهر خلايا Th9 الخاصة بالمستضد تفردًا في حركتها
إنتاج السيتوكين والاحتباس القصير في موقع الالتهاب. إمونول. 185 ، 6795-6801 (2010).
29. Wilhelm، C.et al. يوضح مراسل القدر -9 الاستقراء الفطري لـ IL-
9 ـ الاستجابة في التهاب الرئة. نات. إمونول. 12 ، 1071-1077 (2011).
30. بانياس ، ج. دور TL1A ومستقبله DR3 في نموذجين للمزمن
التهاب اللفائفي الفئران. بروك. ناتل أكاد. علوم. USA 103 ، 841-8446 (2006).
31. بيتز ، BCet al. BATF ينسق جوانب متعددة لوظيفة الخلية B و T المطلوبة
للاستجابات الطبيعية للأجسام المضادة. إكسب. 207 ، 933-942 (2010).
32. شرامل ، بو وآخرون. يختلف عامل النسخ BATF -1 لـ AP في T (H) 17-
المبادرة. Nature 460، 405-409 (2009).
33. Glasmacher، E. et al. عنصر تنظيمي جينومي يوجه التجميع و
وظيفة معقدات AP الخاصة بالمناعة -1- IRF. Science 338، 975-980 (2012). 34. لي ، ب وآخرون. تعتبر BATF-JUN ضرورية للنسخ بوساطة IRF 4- في الخلايا التائية. طبيعة سجية
490,543-546(2012).
35. ياو ، و. إنترلوكين -9 مطلوب لعلاج التهاب مجرى الهواء التحسسي بوساطة
بواسطة السيتوكين TSLP.Immunity 38 ، 360-372 (2013).
36. Ciofani، M. et al. شبكة تنظيمية تم التحقق من صحتها لمواصفات خلية Th17. خلية
151,289-303(2012).
37. Tussiwand، R.et al. تطوير الخلايا التغصنية التعويضية بوساطة BATF-
تفاعلات IRF. Nature 490، 502-507 (2012).
38. إيواتا ، إيه وآخرون. يتم تحديد جودة إشارات TCR من خلال التقارب التفاضلي لـ
معززات لمركب عامل النسخ المركب BATF-IRF4. نات. Immunol.18 ، 563-572 (2017).
39. نباتي ، ف. وآخرون. عامل النسخ IRF1 يحدد IL -21- التابع
وظائف مضادة للسرطان لخلايا TH9. نات. إمونول. 15 ، 758-766 (2014).
40. Xiao، X. et al. تفضل إشارات OX40 تحريض خلايا T (H) 9 والمجرى الهوائي
اشتعال. نات. إمونول. 13 ، 981-990 (2012).
41. Wang، C. et al. مطلوب BATF للتعبير الطبيعي عن توجيه القناة الهضمية
مستقبلات الخلايا التائية المساعدة استجابة لحمض الريتينويك. ياء إكسب. ميد. 210 ، 475-489 (2013).
42. كارا ، إي وآخرون. محاور مستقبلات كيموكين مميزة تنظم تهريب خلايا Th9
لمواقع التهابات الحساسية والمناعة الذاتية. J. إمونول. 191 ، 110-117 (2013).
43. Esplugues، E.et al. يحدث التحكم في خلايا TH17 في الأمعاء الدقيقة. طبيعة 475 ،
514-518(2011).
44. شيه ، دي كيو وآخرون. تثبيط عامل ليفي جديد ينعكس تيلا
تليف القولون. مناعي الغشاء المخاطي 7 ، 1492-1503 (2014).
45. Ostanin، DV et al. نموذج نقل الخلايا التائية لالتهاب القولون المزمن: مفاهيم واعتبارات وحيل التجارة. أكون. J. Physiol. الجهاز الهضمي. فيزيول الكبد. 296، G 135- G146 (2009).
46. تشين، JEet al. يعتمد توظيف المجرى الهوائي للكريات البيض في الفئران على ألفا 4-
الإنتغرينات وجزيء التصاق الخلايا الوعائية -1. أكون. J. Physiol. 272 ، L 219- L29 (1997).
47. ويجمان ، ب. وآخرون. العزلة والتحليل اللاحق لمخصصات الصفيحة الفأرية
خلايا وحيدة النواة من أنسجة القولون. نات. بروتوك. 2 ، 2307-2311 (2007).