تم تحديد البروتين المنشط Rho-GTPase Myosin MYO9A باعتباره الجين المرشح الجديد لتصلب الكبيبات القطاعي البؤري الأحادي المنشأ
Mar 12, 2022
joanna.jia@wecistanche.com/ واتساب: 008618081934791
Qi Li1 و Ashima Gulati2،6 و Mathieu Lemaire3،7 و Timothy Nottoli4 و Allen Bale3 و Alda Tufro1،5
1 قسم طب الأطفال ، قسم أمراض الكلى ، كلية الطب بجامعة ييل ، نيو هيفن ، كونيتيكت ، الولايات المتحدة الأمريكية ؛ 2 قسم الطب الباطني ، قسم أمراض الكلى ، كلية الطب بجامعة ييل ، نيو هيفن ، كونيتيكت ، الولايات المتحدة الأمريكية ؛ 3 قسم علم الوراثة ، كلية الطب بجامعة ييل ، نيو هافن ، كونيتيكت ، الولايات المتحدة الأمريكية ؛ 4 مركز ييل للتحرير الجيني ، كلية الطب بجامعة ييل ، نيو هافن ، كونيتيكت ، الولايات المتحدة الأمريكية ؛ و 5 قسم علم وظائف الأعضاء الجزيئي والخلوي ، كلية الطب بجامعة ييل ، نيو هافن ، كونيتيكت ، الولايات المتحدة الأمريكية
الكلمات الرئيسية: FSGS ؛ تفاعل Myo9A-actin-calodulin ؛ متغيرات MYO9A ؛ نشاط RhoA
تصلب الكبيبات البؤري القطاعي(FSGS) هو اعتلال خلوي يؤدي إلى فشل كلوي ، والذي غالبًا ما يظل سببه الجزيئي دون حل. هنا ، نصف فقدان MYO9A النادر للطفرة غير المتجانسة غير المنطقية (ص.FSGS/بروتينية. تم تحديد متغيرات MYO9A ذات الأهمية غير المؤكدة من خلال تسلسل الإكسوم الكامل في مجموعة من 94 مريضًا مثبتًا بالخزعة مع FSGS. MYO9A عبارة عن ميوسين غير تقليدي مع مجال Rho-GAP الذي يتحكم في تجميع تقاطع الخلايا الظهارية والارتباطات المتقاطعة وحزم الأكتين ويقوم بإلغاء تنشيط بروتين GTPase الصغير المشفر بواسطة جين RHOA. يرتبط نشاط RhoA بتنظيم الهيكل الخلوي لتكوين ألياف إجهاد الأكتين وانقباض الأكتوموسين. تم الكشف عن Myo9A في الفئران والخلايا البشرية في المختبر وفي الجسم الحي. تم تطوير الفئران التي تحمل p.Arg701 * MYO9A (Myo9AR701X) الناتجة عن التحرير الجيني
بيلة بروتينية ، وإفساد خلايا البودوسيت ، وFSGS. كشفت الكلى والخلايا podocytes من الفئران المتحولة Myo9AR701X / D عن نقص في فرداني Myo9A ، وزيادة نشاط RhoA ، وانخفاض تفاعل Myo9A-actin-kalodulin ، وضعف ارتباط خلايا podocyte ، والهجرة. تشير نتائجنا إلى أن Myo9A هو مكون جديد لجهاز الهيكل الخلوي للخلية البودوسية الذي ينظم نشاط RhoA ووظيفة خلية البودوسيت. وهكذا ، فإن الفئران Myo9AR701X / تلخص النمط الظاهري لـ proband FSGS ، وتوضح أن p.R701X Myo9A هي طفرة تسبب FSGS في الفئران ، وتشير إلى أن طفرات MYO9A المتغايرة فقدان الوظيفة قد تسبب شكلاً جديدًا من الجسد البشري المهيمن. FSGS. ومن ثم ، تحديد الممرض MYO9A
المتغيرات في الأفراد الإضافيين مع عائلي أو متقطعFSGSهناك حاجة للتأكد من مساهمة الجينات في المرض.
بيان متعدية
يحدد هذا العمل طفرة فقدان الوظيفة في الميوسين 9A (MYO9A) في عائلة مصابة بالبيلة البروتينية والتصلب الكبيبي القطاعي البؤري (FSGS) والمتغيرات MYO9Aذات أهمية غير مؤكدة في مجموعة FSGS. Myo9A الفئران التي تؤوي طفرة p.Arg701 * تطور بيلة بروتينية وFSGS، استنساخ النمط الظاهري للأمبيرات. يوفر هذا النموذج الحيواني الجديد رؤى ميكانيكية جديدة حول وظائف Myo9A في الخلايا البودوسية وتمكن من اختبار العلاجات التجريبية لـ FSGS. تشير البيانات إلى أن طفرات MYO9A لفقدان الوظيفة متغايرة الزيجوت قد تساهم فيFSGSطريقة تطور المرض. نقترح تضمين MYO9A في لوحات الاختبارات الجينية FSGS.
تصلب الكبيبات البؤري القطاعي(FSGS) هي آفة نسيجية يمكن أن تؤدي إلى مرض الكلى في نهاية المرحلة .1 تظهر الدراسات الجينية أن FSGS هي إلى حد كبير اعتلال الخلايا العظمية ، حيث تعبر الخلايا البادئة عن معظم الجينات الطافرة المسببة. في أكثر من نصف الحالات .3 وبالتالي ، فإن تحديد الجينات الإضافية المسببة لـ FSGS وتسببها الجزيئي أمر ذو صلة سريريًا. هنا نحدد الميوسين 9A (MYO9A) كجين مرشح جديد لـ FSGS البشري عن طريق تسلسل الإكسوم الكامل (WES). الهدف العام لهذه الدراسة هو تحديد ما إذا كان متغير MYO9A النادر الذي تم تحديده في المرضى يغير وظيفة خلية البودوسيت ويسبب FSGS في الجسم الحي. يشفر MYO9A الميوسين غير العضلي غير التقليدي الذي لم يكن مرتبطًا سابقًا بأمراض الكلى البشرية. 4 تم الإبلاغ عن طفرات MYO9A في مرضى التهاب المفاصل ومتلازمة الوهن العضلي الخلقي. وظائف ، بما في ذلك تنظيم الحركة والشكل ، وتهريب العضيات ، والإشارات. تم الإبلاغ عن 7-9 طفرات Myosin IIA (MYH9) و myosin 1E (MYO1E) لتسبب مرض الكبيبات و FSGS المتنحية 10-12 فئة -9 تشتمل الميوسينات على MYO9A و MYO9B التي يتم التعبير عنها بواسطة الخلايا الظهارية والمناعة ، على التوالي. رهوا. يتم التعبير عن Myo9A mRNA في الظهارة البطانية في الدماغ وفي الخصية والرئة وظهارة الكلى .4 تتطور الفئران الخاضعة للضربة القاضية في Myo9A استسقاء الرأس التدريجي ، موه الكلية الخفيف ، والاعتلال الأنبوبي. 9 الأهم من ذلك ، أن Myo9A كافٍ لربط خيوط الأكتين المتقاطعة وحزمها مما يؤدي إلى تكوين شبكات أكتين.
ينظم RhoA ديناميكيات الأكتين podocyte ويحافظ على نفاذية الكبيبات 17. تسبب طفرات المؤثرات النهائية (INF2) 19 والمنظمين لمثبط تفكك Rho guanosine diphosphate alpha (ARHGDIA) 3 و Rho-GAP24 (ARHGAP24) 20 بيلة بروتينية و FSGS. وهكذا ، صقلنشاط Rho-GTPaseأمر بالغ الأهمية للحفاظ على النمط الظاهري للخلية الجسدية في الجسم الحي. 18
هنا نبلغ أن MYO9A هو بروتين خلية بودوسية جديد ، والذي عند تحوره في الفئران يؤدي إلى بيلة بروتينية ، وإفساد عملية القدم (FPE) ، و FSGS ، مما يؤدي إلى تكرار النمط الظاهري البشري المرتبط بـ p.Arg701 * MYO9A البديل. تكشف النتائج التي توصلنا إليها عن أهمية Myo9A في خلايا podocytes ، وتوضح أن Myo9A ينظم خلية podocyte RhoA ، وتقدم أول دليل على أن p.Arg701 * Myo9A يسبب خللًا في الخلايا البودوسية عن طريق الفشل في التنظيم السلبي لـ RhoA وتقليل تفاعل Myo9A-actin-kalodulin.

cistancheيستطيععلاج أمراض الكلىتحسنوظيفة الكلى
طُرق
WES
تم إجراء WES لعينات الحمض النووي من 2 من الأشقاء المتأثرين و 94 من أفراد المجموعة من التجربة السريرية لتصلب الكبيبات البؤري (FSGS-CT ؛ NCT00135811) في مركز ييل لتحليل الجينوم ومختبر Yale DNA السريري على منصات Illumina. 21-26 FSGS- تم استجواب مجموعة بيانات CT الفوج CT لتحديدهاالمتغيرات MYO9Aمع قطع تردد أليل ثانوي # {{0}. 01 بالمائة للمتغيرات متغايرة الزيجوت و # 0.1 بالمائة للمتغيرات متجانسة الزيجوت والمركبة متغايرة الزيجوت ، تم تقييمها باستخدام المعلوماتية الحيوية MetaSVM و 27 SIFT و 28 و CADD29. تم تأكيد المتغيرات MYO9A من خلال تسلسل Sanger. لوحة جينية مكونة من 64 جينًا يسبب FSGS استنادًا إلى OMIM ، وراثة مندلية على الإنترنت في الإنسان ، وقاعدة البيانات (omim.org) ، والأدبيات المرتبطة بـ "FSGS" ، أو "البيلة البروتينية الكبيبية" ، أو "المتلازمة الكلوية" (أو مزيج من هذه المصطلحات) لتحديد المتغيرات ذات الصلة.
جيل knockin Myo9AR701X الفئران
لقد أنشأنا الفئران Myo9AR701X عن طريق تحرير الجينات بوساطة CRISPR / Cas 9-. تم تضمين الطرق الكاملة في الطرق التكميلية. تم استخدام Myo9AR701X knockin وزملائه من النوع البري ، ذكورًا وإناثًا ، وفقًا للبروتوكولات المعتمدة من لجنة رعاية واستخدام الحيوانات في مركز أبحاث الحيوانات في جامعة ييل.
علم الأنسجة / IF
تمت معالجة خزعة الكلى البشرية وكلى الفأر من أجل الأنسجة ، والتألق المناعي (IF) ، والفحص المجهري الإلكتروني (TEM) كما هو موصوف. كانت الأجسام المضادة الأولية هي الفئران المضادة لـ MYO9A (استنساخ 4C11 ؛ أبنوفا ، تايبيه ، تايوان) ، أرنب مضاد للبودوسين (P0372 ؛ سيجما ، سانت لويس ، MO) ، مضاد للأرانب (L9393 ؛ Sigma) ، مضاد للأكوابورين (PAS) -78809 ؛ Invitrogen ، Carlsbad ، CA) ، والأرنب المضاد للميجالين ؛ 33 من الأجسام المضادة الثانوية هي Alexa Fluor -488 و 594- المقترنة (Invitrogen). تم الحصول على الصور باستخدام مجهر متحد البؤر من Olympus IX71 (Olympus Corp ، شينجوكو ، اليابان) أو Leica SP 5- Spectral (Leica Camera ، Wetzlar ، Germany).
لطخة مناعية / ترسيب مناعي
تم حل البروتينات عن طريق الرحلان الكهربائي لهلام دوديسيل كبريتات-بولي أكريلاميد وكتلة مناعية كما هو موصوف سابقًا ؛ 31،32 بمضاد MYO9A (استنساخ 4C11) ، أكتين (A2066 ؛ سيغما) ، كالمودولين (EP799Y ؛ Abcam ، كامبريدج ، المملكة المتحدة) ، glyceraldehyde {{ 9}} الفوسفات ديهيدروجينيز (6C5 ؛ ميليبور كورب ، بيرلينجتون ، ماساتشوستس) ، RhoA (67B9 ؛ تقنية تشوير الخلايا ، بيفرلي ، ماساتشوستس). تم إجراء ترسيب Coimmunoprec ترسيب كما هو موصوف ، 34،35 مع الجسم المضاد متعدد الأضلاع للأرنب MYO9A (A 305-702 AM ؛ Bethyl Laboratories ، Montgomery ، TX) ، متبوعًا بالتكتل المناعي

cistanche لتصلب الكبيبات البؤري القطعي
PCR الكمي
تم نسخ إجمالي RNA باستخدام مجموعة iScript cDNA Synthesis (مختبرات Bio-Rad ، Hercules ، CA) ، وتم تضخيمها باستخدام iQ SYBR Green Supermix (Bio-Rad) ، و Myo9A polymerase chain reaction (PCR) بادئات: 50 TCTGAGAAGTAGCAGGAATGC -30 و 50- AGCAACCACAGCTCTGAAA -30 باستخدام CFX 96- Touch-Real-Time-PCR (Bio-Rad). تم تطبيع Myo9a mRNA إلى GAPDH mRNA باستخدام طريقة DDCt 2- ، كما هو موصوف.
الفحص المجهري TEM / المناعي
تم إجراء TEM كما هو موصوف .32 بالنسبة إلى EM immunogold EM ، تم إصلاح كلية الفئران من النوع البري ، وتم إخماد التجميد شديد الرقة ، وحظره ، واحتضانه باستخدام جسم مضاد أولي مضاد لـ MYO9A (استنساخ 4C11). كان الجسم المضاد الثانوي هو IgG للأرنب المضاد للفأر ، وكان اتحاد الذهب هو الماعز والأرنب 10 نانومتر من الذهب. تم إصلاح الأقسام بعد تثبيتها وتلطيخها وفحصها على FEI Tecnai Biotwin (LaB6 ، 80 كيلو فولت) TEM.
عزل الخلايا البدائية الأولية والفحوصات الوظيفية
تم عزل Podocytes من النوع البري و Myo9AR701X / الكلى كما هو موصوف مع بعض التعديلات. تم إجراء 37،38 اختبارًا للالتصاق كما هو موصوف وقياسًا كميًا باستخدام تلطيخ البنفسجي البلوري
ضربة قاضية Myo9A
تم إحداث ضربة قاضية Myo9A (Myo9AKD) في خلايا الفئران الخاملة من النوع البري باستخدام Myo9A RNA الصغير المتداخل (سيرنا) (L -006539- ON-TARGETplus ، Dharmacon ؛ Horizon Discovery ، كامبريدج ، المملكة المتحدة) باتباع إرشادات الشركة المصنعة. تم استخدام خلايا podocytes وخلايا podocytes غير المنقولة باستخدام siRNA غير المستهدفة (D -001810-10- ON-TARGETplus Non-Targeting-control ، Dharmacon) كعناصر تحكم.

Figure 1 | Heterozygous nonsense MYO9A mutation in a family with focal segmental glomerular sclerosis (FSGS)/proteinuria. (a) A novel heterozygous single base-pair mutation that leads to a stop codon in exon 14 of MYO9A c.C2101T: p.R701X (p.Arg701*) in a patient with proteinuria and FSGS. Nucleotide sequence traces show the C>طفرة T مشتركة بواسطة proband ، والأخت ، والأم (أعلى ، يشار إليها بواسطة *) وتسلسل من النوع البري (WT) من الأب (أسفل) ، بناءً على التسلسل المرجعي البشري MYO9A NM _006901 .4. (ب) خزعة الكلى من المجس تظهر FSGS وتسلل خلالي خفيف (حامض دوري وصمة عار ، تكبير أصلي X 400). (ج) يُظهر أصل العائلة الفصل بين النمط الوراثي والنمط الظاهري: الأفراد المصابون ببروتينية / FSGS ومتغير MYO9A p.R701X (رموز صلبة) ، نوع بري (رمز فارغ) ، أو نمط وراثي MYO9A غير معروف (يشار إليه بعلامة #). (د) النوع البري MYO9A (NP _008832. 2) مجالات البروتين: المجال الحركي (الرمادي) يشمل الحلقة 2 (أصفر) وموقع ربط كالمودولين (أحمر) ، ومجال العنق (أزرق) ، ومجال الذيل (وردي) ) بما في ذلك مجال البروتينات التنشيطية Rho-guanosine triphosphatase (Rho-GAP) (الأخضر) ؛ يشار إلى حدود المجال برقم بقايا الأحماض الأمينية ؛ تنبأ p.R701X MYO9A داخل موقع ربط كالمودولين في الحلقة 2 ، تفتقر إلى مجالات العنق والذيل ، وتشير العلامات النجمية إلى موقع الخطأالمتغيرات MYO9Aتم تحديد دلالة غير معروفة. (هـ) الحفظ التطوري لبقايا الأحماض الأمينية التي تم تغييرها بواسطة الخطأ MYO9A (تابع)
الشكل 1|(تابع) الطفرات التي تم تحديدها في المرضى الذين يعانون من FSGS: يتم حفظ بقايا MYO9A المتغيرة p.D156G (ص. أرقام المدخلات: H. sapiens (NP _008832. 2)، M. musculus (NP _766606. 2)، R. norvegicus (NP _599162. 1)، G. gallus (XP _015134553. 1) ، D. rerio (E7EZG2.1) ، و X. المختبر- المعهد الأوروبي للمعلومات الحيوية ، https://www.ebi.ac.uk/ Tools / MSA / clustalo /). لتحسين عرض هذه الصورة ، يرجى الاطلاع على النسخة الإلكترونية من هذه المقالة على www.kidney-international.org.
نشاط RhoA
تم قياس RhoA النشط بمقايسة التنشيط Rho (Millipore) باتباع إرشادات الشركة الصانعة.
تحليل احصائي
تم تحليل البيانات باستخدام برنامج GraphPad Prism 8 (سان دييغو ، كاليفورنيا) مع اختبار الطالب غير المقيد مع تصحيح ويلش أو تحليل ويلش للتباين ، حسب الاقتضاء. تم اعتبار P <0. 05="" ذات="" دلالة="">
النتائج
تحديد المتغيرات MYO9A في المرضى الذين يعانون من بروتينية و FSGS
WES21 identified a rare truncating MYO9A mutation in 2 siblings diagnosed with FSGS/proteinuria at 15 and 14 years of age (Figure 1a), presenting with asymptomatic proteinuria w1 to 2 g/d, normal blood pressure, normal renal ultra-sounds, and estimated glomerular filtration rate of 72 and 96 ml/min per 1.73 m2, respectively. Renal biopsy performed on the index case showed FSGS, mild interstitial fifibrosis, and no tubular abnormalities (Figure 1b). The proband's disease progressed over 3 years: estimated glomerular filtration rate decreased to 46 ml/min per 1.73 m2 and proteinuria >2 g/ d while his sister's estimated glomerular filtration rate and proteinuria remained stable. Relevant family history includes a maternal uncle with chronic kidney disease of unknown etiology, a mother with a history of proteinuria and a healthy father, and no consanguinity (Figure 1c). WES revealed a shared nonsense heterozygous MYO9A (NM_006901 c.2101C>T, p.Arg701* ) in the siblings (Figure 1a). This rare MYO9A variant was identified in 1 of 113,632 alleles tested in the Genome Aggregation Database, or gnomAD (http://gnomad. broadinstitute.org), the allele frequency of 8.8 X 10⁻⁶. The parents' genotype revealed that only the mother is heterozygous for c.2101C>T ، pArg701 * MYO9A المتغير ، مما يشير إلى الوراثة السائدة للطفرة (الشكل 1 ج). لا يتوفر النمط الوراثي من عم الأم المصاب بمرض الكلى المزمن. من المتوقع أن يؤدي MYO9A p.Arg701 * (p.R701X) إلى فقدان الوظيفة بسبب اضمحلال mRNA الذي لا معنى له أو للاقتطاع في الحلقة 2 من مجال رأس MYO9A (الشكل 1 د) المطلوب لـ Myo9A لتقاطع الأكتين. .16 يوضح الجدول التكميلي S1 جميع المتغيرات المشتركة بين الأشقاء. لم يتم الكشف عن أي طفرات في FSGS أو المتلازمة الكلوية - الجينات المسببة المبلغ عنها حتى الآن في أي من الأشقاء (الجدول التكميلي S2). على حد علمنا ، هذا هو التقرير الأول الذي يربط فقدان الوظيفة MYO9A طفرة بمرض الكلى البشري.
Analysis of WES data from 94 FSGS patients (from the FSGS-CT cohort)41 identifified 5 unrelated individuals with heterozygous MYO9A missense variants (Table 1) meeting a minor allele frequency cutoff #0.01%; 2 of these individuals' MYO9A variants, p.Asp156Gly and p.Glu765Asp (Figure 1d), are predicted to be deleterious by at least 2 bioinformatics scores: MetaSVM, SIFT, and CADD >18 ؛ 27-29 تعتبر متغيرات الخطأ الثلاثة الأخرى حميدة استنادًا إلى 3 درجات تنبؤ بالمعلوماتية الحيوية. من المحتمل أن يكون للأحماض الأمينية المستبدلة في متغيرات p.Asp 156Gly و p.Glu765Asp وظيفة ذات صلة لأن هذه البقايا يتم حفظها من خلال التطور (الشكل 1 هـ). حددنا أيضًا مريضًا واحدًا يحمل متغيرًا من MYO9A (ص Arg2283His) لم يستوف معايير تردد الأليل الثانوية التي تم الإبلاغ عنها سابقًا في متلازمة الوهن العضلي الخلقي. ) في 5 أفراد مع متغيرات MYO9A.
تعبير MYO9A في خلايا الأقدام والأمراض الكبيبية
تم الكشف عن تعبير البروتين Myo9A عن طريق التجلط المناعي في الكلى والفأر والخلايا البشرية البشرية (الشكل 2 أ). أكدت الكيمياء المناعية التعبير السيتوبلازمي عن MYO9A في الخلايا البشرية البشرية (الشكل 2 ب). تم الكشف عن Myo9A المناعي المناعي بواسطة الفحص المجهري IF في الكبيبات الفأرية ، حيث يتم تحديد موقعها جزئيًا مع podocin (الشكل 2 ج). يحدد الفحص المجهري ثنائي البؤر والوسم المزدوج توطين Myo9A على طول الجانب الخارجي للغشاء القاعدي الكبيبي (GBM) المتجاورة بإحكام أو المتحدرة مع بودوسين (الشكل 2 د) ولامينين (الشكل 2 هـ). يوضح Immunogold EM التوطين الدقيق لـ Myo9A. يتم توزيع جزيئات الذهب في السيتوبلازم عملية القدم وجسم خلية البودوسيت (الشكل 2f و g ، الشكل التكميلي S1B و D). أغشية الشق غير مصنفة بشكل موحد. لا تظهر الخلايا البطانية والبطانية أي علامات مهمة. تم اكتشاف جزيئات الذهب أيضًا في خلايا الأنابيب القريبة (الشكل التكميلي S1C).
لتقييم ما إذا كان تعبير Myo9A معطلاً في أمراض الكبيبات ، قمنا بفحص نموذجين للماوس مرتبطين بالبيلة البروتينية الكلوية. وبالمثل ، ينخفض Myo9A الكبيبي في الفئران المصابة بتصلب كبيبات السكري المتقدم بوساطة الستربتوزوتوسين الناجم عن فرط فيجفا ، 32 مقارنة بـ Myo9A المكتشفة في الفئران المصابة بداء السكري التي لا تفرط في التعبير عن Vegfa (الشكل 3 ب) والفئران غير المصابة بمرض السكر (الشكل 2 ج). يشير توطين عملية القدم Myo9A و Myo9A الكبيبي المنخفض في كلا نموذجي مرض البروتين إلى أن Myo9A قد يلعب دورًا في وظيفة حاجز الترشيح الكبيبي.
الجدول 1|المتغيرات Missense MYO9A المحددة في مجموعة المرضى FSGS-CT

ص 156G ، ص 156Gly ؛ ص E765D ، Glu765Asp ؛ ص M2384V ، ص MT2384Val ؛ ص 17 0 4S ، p.Pro1704Ser ؛ ص 389 م ، Thr389Met. المتغيرات التي تمت تصفيتها بتردد أليل ثانوي # 0.01 بالمائة ، عيّنات n 94 بعد شرح ANNOVAR.
الفئران MYO9AR701X المعدلة جينيا لتطوير FSGS
لتحديد ما إذا كان p.Arg701 * (p.R701X) MYO9A طفرة هراء تسبب مرضًا كبيبيًا في الفئران ، أنشأنا فئران p.Arg701 * (تسمى هنا Myo9AR701X) بواسطة CRISPR / Cas 9- بوساطة التحرير الجيني. 30 متغاير الزيجوت ينتج Myo9AR701X / الفئران المتحولة (الشكل 4 أ) جروًا متحولة قابلة للحياة بطريقة مندلية ، مما يدل على أن الطفرة ليست قاتلة جنينيًا. الطفرات متجانسة الزيجوت تطور استسقاء الرأس التدريجي (الشكل التكميلي S2) ، ترنح ، ونوبات وتموت جميعها تقريبًا قبل 3 أسابيع من العمر ، تذكرنا بالفئران الفارغة Myo9A. حتى سن الرشد.
جميع الفئران المتحولة Myo9AR701X تطور FPE والبروتينية ، وإن كان ذلك في أعمار مختلفة. تظهر طفرات Myo9AR701X / R701X متجانسة الكبيبات تشوه الكبيبات ، والتوسع الأنبوبي ، والقوالب البروتينية على الفحص المجهري الضوئي في عمر أسبوعين (الشكل 4 ب ، الشكل التكميلي S3A). يكشف TEM لـ 2- من الكلى المتحولة Myo9AR701X / R701X التي تبلغ من العمر أسبوعًا عن FPE واسع النطاق ، و GBM سميك وغير منتظم ، ونقص أغشية شق ، تم استبدالها بوصلات ملتصقة (الشكل 4 د). في المقابل ، 2- طفرات Myo9AR701X / متغايرة الزيجوت عمرها أسبوع تُظهر أنسجة كلوية طبيعية وبنية تحتية لحاجز الترشيح الكبيبي (الشكل 4 ج و هـ) ، لا يمكن تمييزها عن رفقاء القمامة من النوع البري (الشكل 4 و) ، كما هو مؤكد من خلال القياس الكمي لعمليات القدم (FP / مم GBM) (الشكل 4g). تم الكشف عن البيلة الألبومين في عينات البول من كل من الفئران المتحولة Myo9AR701X متغايرة الزيجوت ومتماثلة اللواقح بواسطة الرحلان الكهربائي للهلام دوديسيل كبريتات-بولي أكريلاميد الصوديوم (الشكل 4 ح) في عمر أسبوعين.
في عمر 4 أشهر ، تظهر الفئران متغايرة الزيجوت Myo9AR701X / FSGS على الفحص المجهري الضوئي (الشكل 5 أ و ز) ويكشف TEM عن FPE (الأسهم البيضاء) ، وأغشية شق غير طبيعية (أسهم سوداء قصيرة) ، و GBM غير منتظم ، وتوسع مسراق (الشكل 5 ب) . يُظهر القياس الكمي لعمليات القدم FPE كبيرة في Myo9AR701X / þ مقابل الكلى البالغة من النوع البري (الشكل 5 ج). هذا النمط الظاهري الكبيبي مشابه بشكل ملحوظ لتلك التي لوحظت في الخزعة الكلوية للمسبار (الشكل 1 ب). تمتلك الفئران الطافرة Myo9AR701X / البالغة متغايرة الزيجوت نسبة أعلى بشكل ملحوظ في البول من الألبومين والكرياتينين من الفئران من النوع البري المتطابق مع العمر (الشكل 5 د) ولا تظهر أي دليل على بوال أو فقدان الوزن (الشكل 5 هـ و و). في الفحص الدوري لحمض شيف ، تظهر الكلى Myo9AR701X / الكبار FSGS من شدة مختلفة (الأسهم ، الشكل 5 ز) وعدم وجود ضمور أنبوبي وتوسع أو تسلل خلالي. يكتشف الفحص المجهري ثنائي البؤر والوسم المزدوج Myo9A في الأنابيب القريبة ، محيطيًا إلى megalin (رؤوس الأسهم ، الشكل 5 ح ، و k) ، بينما لم يتم الكشف عن Myo9A في قطاعات النيفرون البعيدة التي تعبر عن aquaporin2 (الشكل 5 ح و ط). لا يمكن تمييز العلامات الأنبوبية لكل من العلامات الأنبوبية في Myo9AR701X / البالغة عن الكلى من النوع البري عن طريق الفحص المجهري متحد البؤر (الشكل 5 h و k و i و l). في المقابل ، انخفض تلطيخ Myo9A في الأنابيب القريبة وفي الكبيبات في Myo9AR701X / þ (الشكل 5 ح و 1) مقابل الكلى من النوع البري (الشكل 5 ك ول). توضح هذه النتائج معًا أن pArg701 * هو طفرة Myo9A تسبب FSGS في الفئران ، والتي تلخص النمط الظاهري والوراثة السائدة الجسدية لمتغير MYO9A p.Arg701 * متغاير الزيجوت المحدد في الاختبار.
كيف p. Arg701 * طفرة Myo9A تحفز FSGS؟
استخدمنا Myo9AR7 0 1X الفئران لفحص التسبب الجزيئي لـ FSGS الناجم عن طفرة p.Arg701 * MYO9A. يتناقص تعبير Myo9A في الكلى المدقع Myo9AR701X بشكل ملحوظ في الزيجوت متغايرة الزيجوت ولا يتم اكتشافه في الزيجوت المتماثلة الزيجوت بواسطة IF (الشكل 6 أ) والتخثر المناعي (الشكل 6 ب و ج). أجرينا تفاعل البوليميراز المتسلسل الكمي لتقييم ما إذا كان القصور الفرداني بوساطة تسوس الرنا المرسال غير المعقول يحدث في طفرات Myo9AR701X /. تعبير Myo9A mRNA في Myo9AR701X / كلوي أقل بنسبة 50 في المائة منه في الكلى من النوع البري (48.3 ± 5.6 بالمائة ؛ P <0.0001) (الشكل="" 6="" د)="" ،="" وهو="" ما="" يتوافق="" مع="" قصور="">

يقلل انخفاض Myo9A من تفاعله مع الأكتين والكالموديولين
قمنا بفحص ما إذا كان قصور Myo9A الفرداني يغير تفاعل Myo9A-actin-kalodulin. تؤكد تجارب Coimmunopreclusion التي تقارن من النوع البري و Myo9AR701X / الكلى والخلايا البودوسية تفاعل Myo9A مع الأكتين والكمودولين وتوضح أن تفاعل Myo9A مع كلا البروتينين يتناقص بنسبة W50 بالمائة في Myo9AR701X / الكلى المتحولة وخلايا البودوسيت (الشكل 6e و f) ، على غرار Myo9A كامل الطول. في المقابل ، تظل مستويات التعبير الأكتين والهدموديولين سليمة (المدخلات ، الشكل 6 هـ ، و). لتحليل تفاعلات Myo9A في الإعداد للتعبير المنخفض ، قمنا بإحداث W50 بالمائة Myo9AKD في خلايا الفئران من النوع البري الخالدة باستخدام siRNA ، التي تم تقييمها بواسطة PCR الكمي والتخثر المناعي (الشكل 7 أ و ب) ، ثم أجرينا تجارب الترسيب المناعي. يقلل Myo9AKD تفاعل Myo9A-actin-calodulin بالتناسب مع تعبير Myo9A (الشكل 7 ج). تشير نتائج الترسيب المناعي المشترك معًا إلى أن طفرة متغايرة الزيجوت p.Arg701 * Myo9A و Myo9AKD تقلل من وفرة Myo9A وبالتالي تفاعلها مع الأكتين والكالموديولين. نظرًا لأن Myo9A يربط الأكتين بنسبة 1: 1 مولاري ، 16 تشير بياناتنا إلى أن انخفاض Myo9A في خلايا Myo9AR701X / متغايرة الزيجوت قد يضعف ربط وتجميع الأكتين بوساطة Myo9A.

الشكل 2|(تابع) إلى podocin (أخضر) على جانب GBM (رؤوس الأسهم). تظهر الأجزاء الداخلية نسبة تكبير أعلى. أشرطة=25 ملم. (هـ) يُظهر الفحص المجهري متحد البؤر تلطيخ Myo9A متجاورًا أو مترابطًا مع laminin (أخضر) على طول الجانب الخارجي لـ GBM (إدخالات ورأس السهم). أشرطة=25 ملم. (و ، ز) توطين المجهر الإلكتروني المناعي لـ Myo9A في الكبيبات من كلى الفئران من النوع البري: لوحظت جزيئات الذهب (الأسهم السوداء) في جسم خلية البودوسيت (POD) وعمليات القدم السيتوبلازم (FP) ، ويمكن رؤية بعض جزيئات الذهب عند قاعدة FP بجوار الغشاء القاعدي الكبيبي ولكن ليس عند الفتحات الحاجزة. أشرطة ¼ 500 نانومتر. لتحسين عرض هذه الصورة ، يرجى الاطلاع على النسخة الإلكترونية من هذه المقالة على www.kidney-international.org.
تزيد طفرة Myo9AR701X من نشاط Rho-A
قمنا بقياس نشاط RhoA باستخدام مقايسة منسدلة في الفئران المتحولة والبرية Myo9AR701X ، مع التركيز على متغاير الزيجوت Myo9AR701X / لتوفير رؤية ميكانيكية في النمط الظاهري للإنسان p.Arg701 * MYO9A. يتم زيادة RhoA النشط بشكل ملحوظ في Myo9AR701X / الكليتين (الشكل 8 أ) ، والكبيبات المعزولة (الشكل 8 ب) ، والخلايا الأولية الأولية (الشكل 8 ج) ، مقارنةً بعينات التحكم من النوع البري المقابل. يتراوح حجم الزيادة في GTP-RhoA في عينات Myo9AR701X / من 60 بالمائة في الكبيبات المعزولة إلى 2- أضعاف في الكلى الكاملة وفي خلايا الأقدام (الشكل 8 أ-ج). يكون RhoA النشط أعلى قليلاً في متماثل الزيجوت منه في الكلى المتحولة متغايرة الزيجوت ولكن الفرق ليس مهمًا (الشكل 8 أ). توضح هذه التجارب معًا أن Myo9AR701X يتسبب في زيادة نشاط RhoA
طفرة Myo9AR701X / D و Myo9AKD يغيران سلوك الخلية
لتقييم تأثير تفاعل Myo9A-actin المعطل وزيادة نشاط RhoA الذي تم اكتشافه في Myo9AR701X / الخلايا المتحولة على وظيفتها ، قمنا بقياس التصاق خلايا podocyte والحركة باستخدام فحوصات التعلق والهجرة ، ومقارنة النوع البري بالخلايا البودوسية الأولية الطافرة في ظروف التحكم وعلى تثبيط إشارات RhoA مع مثبط كيناز Rho المرتبط بـ Y27632. توضح هذه التجارب بوضوح أن Myo9AR701X / يضعف حركية خلية البودوسيت (الشكل 8 د ؛ الشكل التكميلي S4) ومرفق خلية البودوسيت (الشكل 8 هـ) بطريقة تعتمد على نشاط RhoA. لتقييم تأثير Myo9A haploinsufficifficiency مباشرة على وظيفة podocyte ، أجرينا فحوصات المرفقات والهجرة لمقارنة خلايا الفئران من النوع البري مع خلايا Myo9AKD التي تعبر عن نسبة 50 بالمائة من Myo9A mRNA والبروتين (الشكل 7 أ و ب). خدم podocytes غير المعالجة بـ siRNA كعنصر تحكم إضافي. يقلل Myo9AKD بشكل كبير من ارتباط الخلايا البودوسية والهجرة ، وهو نفس العيب الذي لوحظ في Myo9AR701X / podocytes (الشكل 8f و g). بشكل جماعي ، تشير البيانات الميكانيكية إلى أن طفرة الزيجوت غير المتجانسة ، ص. نفسر أن هذه الآليات مجتمعة تعطل وظيفة خلية البودوسيت ، والتي يشير إليها انخفاض التعلق والحركة في المختبر ووجود بروتينية في الجسم الحي.
نقاش
تحدد هذه الدراسة Myo9A كمكون جديد لجهاز الهيكل الخلوي للخلية التي تؤثر على وظيفة الخلية من خلال تنظيم نشاط RhoA بشكل سلبي. نحن نصف طفرة MYO9A غير المنطقية النادرة (ص ARG701 *) المرتبطة بـ
FSGS / البيلة البروتينية العائلية وتثبت أن هذه الطفرة تسبب آفات شبيهة بـ FSGS في الفئران ، مما يوفر نظرة ثاقبة لآلية المرض.
تدعم النتائج التي توصلنا إليها فكرة أن MYO9A هو جين مرشح FSGS وأن p.Arg701 * MYO9A هو متغير متورط في FSGS البشري ، استنادًا إلى إرشادات الكلية الأمريكية لعلم الوراثة الطبية لإسناد السببية باستخدام خوارزميات التنبؤ الجيني وترددات الأليل ونماذج الحيوانات التجريبية ، والمقايسات الوظيفية 43،44 إن الأخوة المحتملين الذين يؤويون p.Arg701 * MYO9A ليس لديهم طفرات في الجينات المسببة لـ FSGS المعروفة حتى الآن ولا تعرض أي دليل يشير إلى أسباب ثانوية لـ FSGS. يعزل هذا المتغير في عشيرة صغيرة يتبع نمط وراثي سائد وراثي مع تعبير متغير. يُتوقع أن يكون MYO9A p.Arg701 * متغيرًا لفقدان الوظيفة ، وغائبًا عن exomes التحكم ، وله تردد أليل<0.0001 in="" population="" databases,="" in="" compliance="" with="" american="" college="" of="" medical="" genetics="" standards="" to="" support="" pathogenicity="" and="" consistent="" with="" parameters="" used="" in="" a="" recent="" comprehensive="" report="" on="" genetic="" contributions="" to="" fsgs.43–45="" moreover,="" loss-of-function="" observed/expected="" upper="" bound="" fraction="" for="" myo9a="" is="" 0.3,="" suggestive="" of="" low="" tolerance="" to="" gene="" inactivation="" with="" a="" constraint="" similar="" to="" genes="" known="" to="" cause="" autosomal="" dominant="" fsgs="" (e.g.,="" wt1,="" 0.25="" or="" inf2,="">
حدد فحص WES لمجموعة كبيرة من الأطفال والشباب FSGS غير المرتبطين بمريضين مصابين بمتغيرات خطأ MYO9A متغايرة نادرة (ص 156Gly و p.Glu765Asp). يتضمن كلا متغيري الخطأ MYO9A مخلفات محفوظة بدرجة عالية ، ولها ترددات أليل ثانوية<0.01%, are="" predicted="" to="" be="" deleterious="" and="" have="" not="" previously="" been="" associated="" with="" human="" disease.="" three="" additional="" myo9a="" missense="" variants="" (thr389met,="" p.pro1704ser,="" p.met2384val)="" identified="" in="" this="" fsgs="" cohort="" were="" deemed="" benign="" by="" bioinformatics="" scores.="" these="" 5="" individuals="" do="" not="" carry="" mutations="" in="" known="" fsgs-causing="" genes.="" for="" clinical="" purposes,="" these="" missense="" variants="" should="" be="" considered="" variants="" of="" unknown="" significance="" given="" the="" absence="" of="" experimental="" data="" evaluating="" how="" they="" impact="" myo9a="" function.43,44="" to="" our="" knowledge,="" no="" myo9a="" mutation="" has="" been="" proven="" to="" cause="" a="" specific="" human="" disease="" by="" american="" college="" of="" medical="" genetics="" guidelines.43,44="" association="" of="" compound="" heterozygote="" missense="" myo9a="" variants="" (p.g2282e="" and="" p.y203c)="" with="" arthrogryposis="" was="" reported="" in="" 1="" patient,5="" and="" compound="" heterozygote="" or="" homozygote="" missense="" myo9a="" variants="" (p.r1517h/p.r2283h="" and="" p.d1698g,="" respectively)="" were="" described="" in="" association="" with="" congenital="" myasthenia="" syndrome.6="" a="" nonsense="" homozygous="" myo9a="" (p.r513x)="" was="" associated="" with="" severe="" ventriculomegaly="" and="" fetal="" demise.47="" elegant="" expression="" studies="" support="" a="" role="" for="" myo9a="" at="" the="" neuromuscular="" junction="" and="" its="" intriguing="" regulation="" of="" agrin="" secretion="" and="" actin="">

الشكل 3|التعبير الكبيبي Myo9A في نماذج الفئران المرض الكبيبي. (أ) المتلازمة الكلوية التنموية التي يسببها الإفراط في التعبير فيجفا 31: يظهر التألق المناعي Myo9A (أحمر) في الكبيبات من الفئران العادية غير المستحثة 2- التي يبلغ عمرها أسبوعًا ويقلل بوضوح تعبير Myo9A في الكبيبات من الفئران الكلوية التي تفرط في التعبير عن Vegfa ، في حين أن بودوسين (أخضر) لم يتغير. (ب) داء السكري الناجم عن الستربتوزوتوسين مع أو بدون الإفراط في التعبير فيجفا 32: يكتشف التألق المناعي Myo9A (الأخضر) في الكبيبات من الكلى المصابة بالسكري غير المستحثة (التحكم DM) وانخفاض نشاط المناعة Myo9A بشكل ملحوظ في الكبيبات من الفئران المصابة بداء السكري ، مما يؤدي إلى فرط التعبير عن Vegfa المتقدم الذي يصيب الكبيبات السكري (الكبيبات). 40 ، 6- ديميدينو -2- فينيليندول (DAPI) (أزرق) يظهر نوى من كلا القسمين مع الكبيبات المحددة (خط أبيض فقس). أشرطة=50 ملم. لتحسين عرض هذه الصورة ، يرجى الاطلاع على النسخة الموجودة على الإنترنت من هذه المقالة على www. الكلى الدولية.

Figure 4 | Genotype and phenotype analysis of knockin Myo9AR701X mice at 2 weeks of age. (a) Sanger sequencing traces and deduced amino acid sequences from exon 14 are shown from mutant mice: heterozygous (Het) Myo9AR701X/þ (top), homozygous (Hom) Myo9AR701X/R701X (middle), and wild-type (WT) littermate (bottom). C>تحل طفرة T محل CGA بتشفير Arg (R) بواسطة TGA ، وهو كودون توقف يتنبأ بإنهاء الترجمة في الحمض الأميني 7 0 1. (ب) بقعة حمض-شيف الدورية التمثيلية من 2- كلية متحولة عمرها أسبوع Myo9AR701X / R701X تظهر الكبيبات غير الطبيعية والتوسع الأنبوبي وقوالب البروتين. شريط =20 ملم. (ج) بقعة حمض - شيف دورية تمثيلية من 2- كلية متغايرة الزيجوت Myo9AR701X / عمرها أسبوع تظهر الأنسجة الطبيعية. شريط =20 ملم. (د) يُظهر الفحص المجهري الإلكتروني للإرسال التمثيلي 2- من Myo9AR701X / R701X glomerulus البالغ من العمر أسبوعًا انكسارًا هائلاً لعملية القدم (أسهم بيضاء) ، وغياب أغشية الشق ، واستبدالها بتقاطعات ملتصقة (أسهم سوداء) ، وطابق سفلي سميك وغير منتظم غشاء (GBM). شريط =1 ملم. (هـ) يُظهر الفحص المجهري الإلكتروني للإرسال التمثيلي من 2- أسبوعًا متغاير الزيجوت Myo9AR701X / þ glomerulus عمليات قدم طبيعية (أسهم رقيقة سوداء) وأغشية شق عادية (أسهم بيضاء رفيعة). شريط =1 ملم. (و) يُظهر الفحص المجهري الإلكتروني للإرسال من 2- حامل فضلات WT البالغ من العمر أسبوعًا حاجز الترشيح الكبيبي الطبيعي: عمليات القدم الرفيعة المرتبطة بأغشية شق وخلايا بطانية fenestrated (ECs) ورقيقة GBM. شريط =1 ملم. (ز) تقدير كمية عملية القدم في عمر أسبوعين: تظهر الكلى متماثلة اللواقح Myo9AR701X / R701X عمليات أقل من نصف قدم (FPs) / مم GBM من WT أو Myo9AR701X / متغاير الزيجوت ، مما يشير إلى إضعاف شديد لعملية القدم. P <0.0001 (تحليل="" التباين).="" (ح)="" لطخة="" كوماسي="" الزرقاء="" من="" دوديسيل="" كبريتات="" الصوديوم-بولي="" أكريلاميد="" الكهربائي="" للهلام="" الكهربائي="" ،="" تُظهر="" عينات="" البول="" الزلال="" (alb)="" في="" كل="" من="" myo9ar701x="" r701x="" (plus="" -)="" و="" myo9ar701x="" þ="" (þ="" plus)="" ،="" في="" حين="" أن="" بول="" wt="" خالٍ="" من="" الألبومين.="" يعمل="" ألبومين="" مصل="" الأبقار="" (10="" مجم)="" كعنصر="" تحكم="" في="" الوزن="" الجزيئي.="" pod="" ،="" بودوسيت.="" لتحسين="" عرض="" هذه="" الصورة="" ،="" يرجى="" الاطلاع="" على="" النسخة="" الإلكترونية="" من="" هذه="" المقالة="" على="">

الشكل 5|البالغين متغاير الزيجوت Myo9AR7 {{2 0} 1X / D تحليل النمط الظاهري لفئران طرق العرض. (أ) صبغة حمض شيف الدورية التمثيلية (PAS) من كلية Myo9AR701X / البالغة من العمر 4- شهر تظهر الكبيبة مع التصلب الكبيبي القطاعي البؤري الواسع والتكاثر المسراق. يُظهر الشريط=50 مم (ب) الفحص المجهري الإلكتروني للإرسال التمثيلي من كلية Myo9AR701X / þ البالغة من العمر 4- شهرًا انقلابًا واسعًا في عملية القدم (أسهم بيضاء) ، واستبدال جزئي للأغشية الشقوقية (أسهم سوداء رفيعة) بواسطة الوصلات الملتصقة (أسهم سوداء سميكة). شريط =2 مم (ج) تقدير كمية عملية القدم في الفئران الطافرة Myo9AR701X / البالغة: 4 أشهر من العمر متغاير الزيجوت (Het) يظهر Myo9AR701X / þ 2.2 ± 0.06 FP / مم ، مقارنةً بالنوع البري (WT) ) 3.7 ± 0.13 FP / مم. **** ص<0.0001. (d)="" urine="" (u)="" albumin/creatinine="" (creat)="">
Figure 5 | (continued) ratio at 4 months of age is higher in Myo9AR701X/þ (Het, red dots) than in WT mice (black dots). ***P>0. 001. (هـ) لا يختلف حجم البول (24 ساعة) و (و) وزن الجسم في الفئران WT (n =18) و Myo9AR701X / þ (Het، n =16) الفئران. (g ، j) وصمة PAS التمثيلية من Myo9AR701X / þ (g) و WT (j) الكلى: (g) يُظهر التصلب البؤري المبكر (السهام) وتكاثر الميزانقي في 2 من الكبيبات ، نبيبات طبيعية من الخلف إلى الخلف ولا تتسرب ؛ (ي) يُظهر الكبيبات والأنابيب الطبيعية في كلية WT. أشرطة =50 ملم. (ح ، ك) الفحص المجهري متحد البؤر لـ Myo9A / Megalin المناعي: (ح) تظهر الكلية Myo9AR701X / إشارة Myo9A (حمراء) محدودة (رؤوس الأسهم) في الخلايا الأنبوبية القريبة المسمى بالميجالين (الأخضر) ، والأنابيب القريبة ليست متوسعة ؛ (ك) تُظهر كلية WT أكثر وفرة Myo9A (رؤوس الأسهم) المتاخمة للميجالين في خلايا الأنابيب القريبة. أشرطة =25 ملم. (ط ، ل) الفحص المجهري متحد البؤر لـ Myo9A / Aquaporin2 (AQP2) المناعي: (1) يظهر Myo9AR701X / الكلى محدود Myo9A (أحمر) في الكبيبة (رؤوس الأسهم) ، لم يتم اكتشاف Myo9A في قطاعات النيفرون البعيدة المسمى بـ AQP2 (أخضر) ، وهي غير متوسعة ؛ (ل) تُظهر WT الكلى تلطيخ Myo9A في تلطيخ الكبيبة وتلطيخ AQP2 في قطاعات النيفرون البعيدة. أشرطة =25 ملم. EC، خلية بطانية؛ FP ، السيتوبلازم عمليات القدم. GBM ، الغشاء القاعدي الكبيبي. لتحسين عرض هذه الصورة ، يرجى الاطلاع على النسخة الإلكترونية من هذه المقالة على www.kidney-international.org.

الشكل 6|تعبير Myo9A وتفاعل Myo9A-actin-calodulin في Myo9AR701X في الكلى وخلايا القدم. (أ) يكتشف التألق المناعي Myo9A و podocin الكبيبي: Myo9A المناعي الكبيبي (الأحمر) قوي في الكلى من النوع البري (WT) ، ينخفض بشكل كبير في Myo9AR701X / þ الكبيبات ، ولم يتم اكتشافه في Myo9AR701X / R701X glomeruli ؛ بودوسين (أخضر) يترجم إلى podocytes في جميع الفئران ؛ يظهر التلون الجزئي للخلية podocyte-Myo9A عن طريق الدمج (أصفر). أشرطة =50 ملم. (ب) التخثر المناعي: ينخفض تعبير Myo9A السليم (280 كيلو دالتون) إلى النصف تقريبًا في كليتي Myo9AR701X / þ (متغاير الزيجوت [Het]) ولم يتم اكتشافه في Myo9AR701X / R701X (متجانسة اللواقح [Hom]) الكلى ، * العصابات الأصغر (<75 kda)="" are="" considered="" nonspecific,="" w50="" kda="" bands="" correspond="" to="" igg="" heavy="" chain="" in="" all="" genotypes.="" (c)="" myo9a/actin="" quantification="" (mean±sd),="" n="3" independent="" experiments,="" pool="" from="" 3="" mice="" each.=""><0.001. (d)="" quantitative="" polymerase="" chain="" reaction="" (qpcr):="" myo9a="" mrna="" expression="" normalized="" to="" gapdh="" mrna,="" fold="" change="" (mean±sd),="" n="3" independent="" experiments,="" n="3" individual="" mice="" each.="">< 0.0001.="" (e,f)="" coimmunoprecipitation="" (ip)="" of="" kidney="" lysates="" (e)="" and="" primary="" podocytes="" (f)="" show="" decreased="" myo9a-actin-calmodulin="" interaction="" in="" myo9ar701x/þ="" (het)="" proportionally="" to="" the="" reduced="" myo9a="" expression="" (input);="" note="" input="" of="" actin="" and="" calmodulin="" is="" equal="" in="" both="" genotypes.="" ab,="" antibody.="" to="" optimize="" viewing="" of="" this="" image,="" please="" see="" the="" online="" version="" of="" this="" article="" at="">

We demonstrate Myo9A protein expression in podocyte cell lines and mouse kidney glomeruli and Myo9A subcellular localization in podocytes. Dual immunolabeling and confocal microscopy localized Myo9A along the external aspect of the GBM stained by laminin, tightly contiguous to podocin. Immunogold EM determined precisely Myo9A localization to the cytoplasm of foot processes and podocyte cell bodies, leaving slit diaphragms unlabeled. The apparent Myo9A mesangial localization in nonconfocal IF images was not confirmed by immunogold EM. Our findings are consistent with glomerular MYO9A immunohistochemical localization in human renal biopsies (www.proteinatlas.org/ ENSG00000066933-MYO9A/tissue/kidney). Myo9A was also detected in proximal tubules by IF and immunogold-EM, extending a previous report that did not detect Myo9A in glomeruli.15 The discrepancy in Myo9A tissue localization is probably due to different affinities of the primary antibodies used by Thelen et al.15 and in this study. Similar discrepancies in glomerular MYO9A staining of the same human renal biopsies were noticed using 2 affinity-purified polyclonal antibodies, the higher specificity antibody by protein array resulting in the stronger glomerular signal. Localization of Myo9A mRNA in the kidney by in situ hybridization has also been discrepant;4,15 Myo9A developmental regulation might be involved. RNA-sequencing data suggest Myo9A expression along with most nephron segments in mice and humans, raising the possibility that loss-of-function mutations may lead to phenotypes involving several cell types. Interestingly, we observed a clear decrease in glomerular Myo9A expression in 2 mouse models of proteinuria: developmental nephrotic syndrome and advanced diabetic disease. The latter is consistent with a >2- انخفاض أضعاف تعبير Myo9A بواسطة مصفوفة الحمض النووي التي تم الإبلاغ عنها في فئران Zucker المصابة بداء السكري .49 معًا ، تشير بيانات تعبير Myo9A إلى أن Myo9A قد يلعب دورًا في حاجز الترشيح الكبيبي.
لفهم أهمية p.Arg701 * MYO9A طفرة هراء في الجسم الحي ، أنشأنا الفئران الضاربة Myo9AR701X عن طريق التحرير الجيني. تتطور طفرات Myo9AR701X / R701X متجانسة الزيجوت إلى استسقاء الرأس المترقي ، مما يؤدي إلى وفاة 3 أسابيع من العمر على غرار الفئران Myo9A-null.14 في عمر أسبوعين ، تكشف الكلى متماثلة اللواقح Myo9AR701X / R701X عن النمط الظاهري الكبيبي الأنبوبي الشديد: تشوهات FPE و GBM واسعة النطاق وندرة الأغشية الشقّية والأنابيب المتوسعة المصاحبة لبيلة الألبومين. أظهرت الفئران الفارغة Myo9A البالغة من العمر اعتلال أنبوبي قريب ، بوال ، وبيلة بروتينية منخفضة الوزن الجزيئي. لم تستسلم الفئران الخالية من الاستسقاء الدماغي التدريجي كما هو موصوف سابقًا. 14 نظرًا لأن طفرات Myo9AR701X / R701X متماثلة اللواقح لا تنجو حتى مرحلة البلوغ ، يمكننا فقط التأكد من النمط الظاهري الكبيبي المبكر الموصوف هنا. قد يمثل التوسيع الأنبوبي الذي لوحظ في طفرات Myo9AR701X / R701X التي يبلغ عمرها أسبوعًا 2- دليلًا مبكرًا على اعتلال الأنابيب الموصوف في الفئران البالغة Myo9A-null.
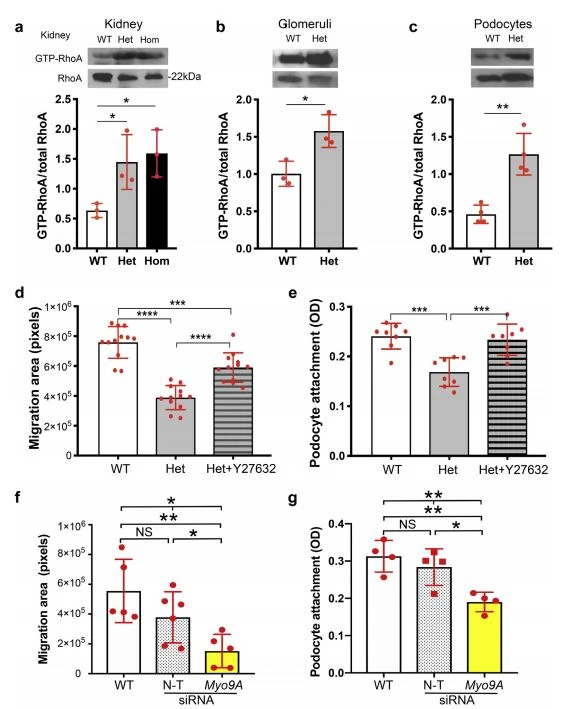
Figure 8 | RhoA activity and podocyte function in Myo9AR701X kidneys and Myo9A knockdown (Myo9AKD) podocytes. (a–c) Active RhoA (guanosine triphosphate [GTP]–RhoA) is increased in Myo9A R701X mutants versus wild-type (WT): >2-fold in whole kidneys (a), w60% in isolated glomeruli (b), >2- أضعاف في خلايا podocytes الأولية (c) ، تمثل البقع الغربية n =3 إلى 4 تجارب مستقلة ، lysates مجمعة من 3 فئران لكل منها ، التقدير الكمي (يعني ± SD) ، تحليل التباين (ANOVA) (أ ) أو اختبار t غير المزاوج (ب ، ج). * ص<0.05,><0.001. (d)="" podocyte="" migration="" assay="" (wound="" assay)57:="" quantification="" of="" the="" migration="" area="" shows="" that="" myo9ar701x/þ="" (heterozygous="" [het])="" podocyte="" migration="" is="" decreased;="" preincubation="" with="" y26732="" partially="" abrogates="" the="" migration="" defect.="" ***p="" <="" 0.0005="" (anova),=""><0.0001 (unpaired="" student's="" t-test).="" (e)="" podocyte="" attachment="" assay="" shows="" decreased="" attachment="" of="" myo9ar701x/þ="" (het)="" podocytes;="" preincubation="" with="" y26732="" corrects="" the="" attachment="" defect.=""><0.0005 (anova).="" (d,e)="" data="" are="" mean±sd,="" n="3" to="" 4="" independent="" experiments,="" n="" ¼="" 3="" mice="" per="" genotype="" per="" experiment.="" (f)="" podocyte="" migration="" assay:="" small="" interfering="" rna="" (sirna)–mediated="" myo9akd="" decreases="" immortalized="" mouse="" podocytes="" migration=""><0.05, anova;=""><0.01, unpaired="" t-test),="" whereas="" migration="" of="" nontargeting="" (n-t)="" sirna-treated="" podocytes="" is="" not="" different="" from="" normal="" podocytes="" (wt).="" (g)="" attachment="" assay:="" myo9akd="" decreases="" immortalized="" mouse="" podocytes="" attachment,="" as="" compared="" to="" podocytes="" treated="" with="" nontargeting="" sirna="" and="" untreated="" wt="" podocytes.="" myo9akd="" data="" are="" mean±sd,="" n="" >="" 3="" independent="" experiments.=""><0.05,><0.01. hom,="" homozygous;="" ns,="" not="" significant;="" od,="" optical="">
النتيجة الرئيسية لهذه الدراسة هي أن الفئران غير المتجانسة Myo9AR701X / الضربة القاضية طبيعية ظاهريًا عند الولادة ولكنها تصاب بيلة الألبومين ، FSGS ، و Podocyte FPE في عمر 4 أشهر ، مما يدل على أن p.Arg701 * Myo9A هي طفرة تسبب FSGS في فئران بالغة. بشكل ملحوظ ، Myo9AR701X / الكلى الطافرة التغييرات النسيجية والبنية التحتية تلخص السمات التشخيصية لخزعة الكلى في البروباند. علاوة على ذلك ، فإن الفئران الطافرة Myo9AR701X / تطور بيلة ألبومين كبيرة بدلاً من بيلة ألبومين ضخمة ، مما يؤدي إلى تكاثر البيلة البروتينية غير الكلوية التي لوحظت في الأشقاء المحتملين وفي العديد من مرضى FSGS البالغين. .15 الميوسينات غير التقليدية متورطة في إعادة امتصاص الألبومين بواسطة الأنابيب القريبة من خلال تفاعلاتها مع Dab2 و cubilin ، ولكن لم يتم إثبات مشاركة Myo9A في هذه العملية. ، أو التوزيع غير الطبيعي للعلامات الأنبوبية القريبة أو البعيدة في الفئران المتغايرة الزيجوت Myo9AR701X /. لا تدعم هذه البيانات الفرضية القائلة بأن FSGS التي لوحظت في Myo9AR701X / الفئران ناتجة عن انسداد أو عيوب أنبوبية.
ميكانيكيًا ، قررنا أن Myo9A mRNA وبروتين Myo9A كامل الطول يتم تقليلهما بنسبة 50 في المائة ، مما يشير بقوة إلى أن الطفرة تؤدي إلى كفاية Myo9A الفردية بسبب تحلل الرنا المرسال غير المعقول. يتبع التنظيم قواعد تحلل الرنا المرسال المعيارية التي تتوسط هراءًا لاقتطاع الطفرات الموجودة في أعلى المنبع السابق للإكسون الأخير. انخفاض بنسبة 50 بالمائة من تعبير بروتين Myo9A في الكلى المتحولة Myo9AR701X / وخلايا الأقدام الأولية وكذلك في Myo9AKD الخلايا البادئة المخلدة يقلل بشكل متناسب من التفاعل بين Myo9A و actin و calodulin. تدعم هذه النتائج التفسير القائل بأن Myo9A haploinsufficiency هو الأساس لتفاعل Myo9A-actin-calodulin المخفض الذي لوحظ في طفرات Myo9AR701X /.
من النتائج الحاسمة لهذا العمل أن p.Arg701 * Myo9A يؤدي إلى فقدان وظيفة Rho-GAP مما يؤدي إلى زيادة نشاط RhoA في الكلى الكاملة Myo9AR701X وكبيبات معزولة وخلايا بودوسيت أولية. علاوة على ذلك ، تُظهر الخلايا البودوسية المتحولة Myo9AR701X / ارتباطًا وحركة مخفضة تعتمد على RhoA. تقلل إشارات Myo9A-GAP من RhoA النشط ولها تأثير ضئيل على Rac1 و Cdc42.9،53 يزيد فقدان الوظيفة Rho-GAPنشاط Rho-GTPaseويؤدي إلى إصابة خلايا البودوسيت ، والبيلة البروتينية ، و FSGS.3،18،20 وبالتالي ، قد يساهم السلوك غير الطبيعي لخلايا بودوسيت المتحولة Myo9AR701X / في تطوير FPE و FSGS بمرور الوقت في Myo9AR701X / الفئران. تتوافق بياناتنا مع التأثير المبلغ عنه لخلل تنظيم RhoA على وظيفة الخلايا الجسدية في الجسم الحي وفي المختبر. 54-56
نظرًا لأن Myo9A يربط الأكتين ويحث على تكوين حزم الأكتين في المختبر على فترات منتظمة 36- نانومتر من خلال التفاعل بشكل تعاوني مع الأكتين والهدموديولين ، يُعتقد أن القياس المتكافئ لتفاعلهما أمر بالغ الأهمية. لتقليل روابط وحزم الأكتين بوساطة Myo9A ، مما يوفر عددًا أقل من المواقع على طول خيوط الأكتين حيث يحدث تعطيل RhoA ، وبالتالي تغيير ديناميكيات الأكتين في الجوار المباشر وسلوك الخلايا البودوسية على المستوى الخلوي. استعاد مثبط الكيناز المرتبط بـ Rho Y27632 جزئيًا عيب التعلق والهجرة الناجم عن Myo9AR701X / þ ، مما يشير إلى وجود مؤثرات RhoA إضافية المصب ، مثل mDia1 ، متورطة. بدلاً من ذلك ، قد يساهم انخفاض الروابط المتقاطعة للأكتين في Myo9AR701X / بشكل مباشر في إضعاف ارتباط خلية البودوسيت والهجرة. قد يؤثر قصور Myo9A الفرداني أيضًا على آليات الاتجار .7-9 الآليات الجزيئية الدقيقة التي ينظم بها Myo9A ديناميكيات الأكتين الخلوية البودوسية لا يزال يتعين توضيحها. باختصار ، حددنا Myo9A كمكوِّن جديد لجهاز الهيكل الخلوي للخلية وطفرة MYO9A غير منطقية التي تشير إلى MYO9A كجين مرشح لـ FSGS البشري ، عن طريق إعادة إنتاج النمط الظاهري للبيلة البروتينية البشرية / FSGS في Myo9AR701X / الضربة القاضية في الفئران وعن طريق جسمية. تجميلي سائد للنمط الظاهري في عشيرة صغيرة. بشكل جماعي ، تشير البيانات بقوة إلى أن Myo9A haploinsufficiency هو الأساس الجزيئي للنمط الظاهري الذي لوحظ في الفئران Myo9AR701X / البالغة. لقد أظهرنا أن التعلق والهجرة معطلتان في خلايا Myo9AR701X / podocytes الطافرة ، التي تنطوي على زيادة نشاط RhoA وتقليل تفاعل Myo9A-actin-kalodulin. بالنظر إلى أن Myo9A يحث على ربط الأكتين وتجميعه بنسبة 1: 1 مولار وملاحظتنا أن Myo9AR701X / يؤدي إلى عدم كفاية الفرد ، وإضعاف خلية البودوسيت ، والعمل الإضافي FSGS ، فإننا نتوقع أن Myo9A قد يكون حاسمًا لديناميكيات الأكتين البودوسية العادية ، على غرار من المعروف أن بروتينات ربط الأكتين (ACTN4 ، INF2) تسبب FSGS المهيمنة وراثيًا عند البالغين عند حدوث طفرة. هناك ما يبرر إجراء دراسات إضافية لتوضيح كيفية تفاعل Myo9A مع خلية البودوسيت RhoA والهيكل الخلوي وبروتينات الحجاب الحاجز الشق ، وما إذا كانت العيوب التي تتوسط Myo9A في تكوين الحزم والرابط المتقاطع للأكتين تغير بشكل مباشر بنية الهيكل الخلوي للخلية البودوسية. تشمل القيود المفروضة على هذه الدراسة لتحديد السببية عدم القدرة على تمديد نسب النمط الجيني بروبان والافتقار إلى أقرباء آخرين لهم نفس الطفرة. مزيد من الدراسات ضرورية للتحقق من صحة نتائج WES التي توصلنا إليها في المرضى الإضافيين الذين يعانون من FSGS العائلي أو المتقطع قبل p.Arg701 *متغير MYO9Aيمكن اعتبارها مسببة للمرض ويمكن استخدام هذه المعلومات في اتخاذ القرارات السريرية.

إفشاء
أعلنت جميع المؤلفين لا المصالح المتنافسة.
شكر وتقدير
تم دعم هذا العمل من خلال منح المعاهد الوطنية للصحة لـ AT (NIH-RO1DK109434) ومركز ييل لعلم الجينوم المندلي (NIH-U 54- HG006504).
نشكر السيد سليم (جامعة بريستول ، المملكة المتحدة) لتوفيره خلايا بودوسيت بشرية خالدة ، جي مويكل (كلية الطب بجامعة ييل ، قسم علم الأمراض) لتوفير صور الخزعة ، مختبر S. طب الكلى) للحصول على المشورة بشأن عزل خلايا القدم وفحص الالتصاق ، T. Ardito (كلية الطب بجامعة ييل ، قسم علم الأمراض) و V. Kakade (كلية الطب بجامعة ييل ، قسم الطب / أمراض الكلى) للمساهمة في IF
والتصوير متحد البؤر ، SueAnn Mentone (كلية الطب بجامعة ييل ، قسم الخلية وعلم وظائف الأعضاء الجزيئي) للمساهمة في دراسات EM ،تصلب الكبيبات البؤري القطاعيالمرضى والأسر ، ومستودع المعهد الوطني للسكري وأمراض الجهاز الهضمي والكلى (FSGS-CT ، NCT00135811) لتوفير عينات الحمض النووي.
مواد تكميلية
ملف تكميلي (PDF)
الطرق التكميلية. WES وتحليل بيانات المعلومات الحيوية ، وتوليد الفئران المدققة Myo9AR701X ، وطرق تفصيلية أخرى.
الشكل S1. يقوم جهاز Immuno-EM بتوطين تعبير Myo9A على الخلايا الكبيبية الفأرية والظهارة الأنبوبية.
الشكل S2. يسبب Myo9AR701X / R701X استسقاء الرأس المتقدم للولدان.
الشكل S3. الأنسجة الكلوية بعد الولادة في الفئران المتحولة Myo9AR701X.
الشكل S4. مقايسة هجرة بودوسيت (فحص الجرح).
الجدول S1. قائمة بجميع المتغيرات المشتركة من قبل الأخوة المحتملين.
الجدول S2. قائمة 64 جين FSGS-proteinuria-NS تم استجوابها في مجموعة FSGS-CT. المراجع التكميلية.
المراجع
1. يغينز أرسي. طيف الاعتلال الخلوي: نظرة موحدة لأمراض الكبيبات. الكلى Int. 2007 ؛ 71: 1205-1214.
2. Sadowski CE ، Lovric S ، Ashraf S ، et al. يتسبب جين واحد في 29.5 بالمائة من حالات المتلازمة الكلوية المقاومة للستيرويد. J آم سوك نفرول. 2015 ؛ 26: 1279-1289.
3. جي إتش واي ، سايسوات بي ، أشرف إس وآخرون. تسبب طفرات ARHGDIA متلازمة كلوية عبر إشارات RHO GTPase المعيبة. ياء كلين إنفست. 2013 ؛ 123: 3243-3253.
4. Gorman SW ، Haider NB ، Grieshammer U ، وآخرون. التعبير التنموي والاستنساخ للميوسين غير التقليدي IXA (MYO9A) وهو جين في منطقة متلازمة بارديت بيدل (BBS4) في الكروموسوم 15q 22- q23. علم الجينوم. 1999 ؛ 59: 150-160.
5. Bayram Y و Karaca E و Coban Akdemir Z وآخرون. المسببات الجزيئية لمرض التهاب المفاصل في عائلات متعددة من أصل تركي في الغالب. ياء كلين إنفست. 2016 ؛ 126: 762-778.
6. O'Connor E، Töpf A، Müller JS، et al. تحديد الطفرات في جين MYO9A في المرضى الذين يعانون من متلازمة الوهن العضلي الخلقي. مخ. 2016 ؛ 139: 2143-2153.
7. Masters TA ، Kendrick-Jones J ، Buss F. Myosins: تنظيم المجال ، والخصائص الحركية ، والأدوار الفسيولوجية ، والوظائف الخلوية. هاندب أكسب فارماكول. 2017 ؛ 235: 77-122.
8. ليو كيه سي ، تشيني ري. الميوسينات في تقاطعات الخلايا. الهندسة الحيوية. 2012 ؛ 2: 158-170.
9. Omelchenko T ، Hall A. ينظم Myosin-IXA الهجرة الجماعية للخلايا الظهارية من خلال استهداف نشاط RhoGAP لتقاطعات الخلية الخلوية. كور بيول. 2012 ؛ 22: 278-288.
10. Sekine T و Konno M و Sasaki S et al. المرضى الذين يعانون من متلازمات Epstein-Fechtner بسبب طفرات MYH9 R702 يصابون بمرض كلوي بروتيني تدريجي. الكلى Int. 2010 ؛ 78: 207-214.
11. ميلي سي ، إياتروبولوس بي ، دوناتيلي آر وآخرون. طفرات MYO1E وتصلب كبيبات مقطعي بؤري عائلي في مرحلة الطفولة. إن إنجل جي ميد. 2011 ؛ 365: 295-306.
12. Krendel M ، Kim SV ، Willinger T ، وآخرون. يؤدي اضطراب الميوسين 1e إلى إصابة خلايا البودوسيت. J آم سوك نفرول. 2009 ؛ 20: 86 - 94.
13. Bähler M و Elfrink K و Hanley PJ وآخرون. الوظائف الخلوية للفئة IX myosins في الخلايا الظهارية والخلايا المناعية. شركة Biochem Soc Trans. 2011 ؛ 39: 1166-1168.
14. أبوحمد م ، جروب ك ، سان الرابع ، وآخرون. ينظم الميوسين IXa التمايز الظهاري ، ويؤدي نقصه إلى استسقاء الرأس. خلية مول بيول. 2009 ؛ 20: 5074-5085.
15. ثيلين إس ، أبوحمد إم ، سياريمبولي جي وآخرون. RhoGAPmyosin IXa هو منظم لوظيفة النبيبات الكلوية. أنا J Physiol الكلوي Physiol. 2015 ؛ 309: F501 – F513.
16. Saczko-Brack D ، Warchol E ، Rogez B ، وآخرون. التنظيم الذاتي لشبكات الأكتين بواسطة الميوسين الأحادي. بروك ناتل أكاد ميد الولايات المتحدة أ .2016 ؛ 113: E8387 – E8395.
17. Asanuma K ، Yanagida-Asanuma E ، Faul C ، وآخرون. ينظم Synaptodin تنظيم الأكتين وحركة الخلية عن طريق تنظيم إشارات RhoA. نات سيل بيول. 2006 ؛ 8: 485-491.
18. Mouawad F، Tsui H، Takano T. دور Rho-GTPases والبروتينات المنظمة لها في وظيفة الخلايا الكبيبية. يمكن فارماكول فيزيول ي. 2013 ؛ 91: 773-782.
19. براون إي جيه ، شلوندورف شبيبة ، بيكر دي جي ، وآخرون. الطفرات في جين الفورمين INF2 تسبب تصلب كبيبات مقطعي بؤري. نات جينيه. 2010 ؛ 42: 72-76.
20. Akilesh S ، Suleiman H ، Yu H ، et al. يعمل Arhgap24 على تثبيط نشاط Rac1 في خلايا الفئران الجرثومية ، ويرتبط الشكل المتحور بتصلب الكبيبات القطاعي البؤري العائلي. ياء كلين إنفست. 2011 ؛ 121: 4127-4137.
21. تشوي إم ، شول الأول ، جي دبليو ، وآخرون. التشخيص الجيني عن طريق الالتقاط الكامل للإكسوم وتسلسل الحمض النووي الموازي بشكل كبير. بروك ناتل أكاد سسي أوس أ .2009 ؛ 106: 19096-19101.
22. Choi M ، Scholl UI ، Yue P ، وآخرون. طفرات قناة Kþ في أورام الغدة الكظرية المنتجة للألدوستيرون وارتفاع ضغط الدم الوراثي. علوم. 2011 ؛ 331: 768-772.
23. Bamshad MJ ، Shendure JA ، Valle D ، وآخرون. مراكز علم الجينوم المندلي: مبادرة جديدة واسعة النطاق لتحديد الجينات الكامنة وراء الظروف المندلية النادرة. آم J ميد جين .2012 ؛ 158A: 1523-1525.
24. Li H ، Durbin R. محاذاة قراءة قصيرة سريعة ودقيقة مع تحويل Burrows-Wheeler. المعلوماتية الحيوية. 2009 ؛ 25: 1754-1760.
25. McKenna A و Hanna M و Banks E et al. مجموعة أدوات تحليل الجينوم: إطار عمل MapReduce لتحليل بيانات تسلسل الجيل التالي من الحمض النووي. الدقة الجينوم. 2010 ؛ 20: 1297-1303.
26. Yang H ، Wang K. شرح المتغير الجينومي وتحديد الأولويات مع ANNOVAR و wANNOVAR. نات بروتوك. 2015 ؛ 10: 1556-1566.
27. Dong C ، Wei P ، Jian X ، et al. مقارنة تكامل طرق التنبؤ بالضرر لـ SNVs غير المرادفة في دراسات تسلسل الإكسوم الكامل. همهمة مول جينيه. 2015 ؛ 24: 2125-2137.
28. Sim NL ، Kumar P ، Hu J ، et al. خادم الويب SIFT: التنبؤ بتأثيرات بدائل الأحماض الأمينية على البروتينات. الدقة الأحماض النووية. 2012 ؛ 40: W452-W457.
29. رينتش ف ، ويتن د ، كوبر جي إم ، وآخرون. CADD: التنبؤ بضرر المتغيرات في جميع أنحاء الجينوم البشري. الدقة الأحماض النووية. 2019 ؛ 47: D886 - D894.
30. Yang H ، Wang H ، Jaenisch R. توليد فئران معدلة وراثيًا باستخدام هندسة الجينوم CRISPR / Cas بوساطة. نات بروتوك. 2014 ؛ 9: 1956-1968.
31. فيرون D ، Bertuccio CA ، Marlier A ، وآخرون. يتسبب عامل النمو البطاني الوعائي لخلايا الدم (Vegf₁₆₄) المفرط في حدوث تصلب كبيبات عقدي شديد في نموذج فأر مصاب بداء السكري من النوع 1. السكري. 2011 ؛ 54: 1227-1241.
32. فيرون D ، Reidy K ، Marlier A ، وآخرون. يؤدي تحريض الإفراط في التعبير عن خلايا بودوسيت VEGF164 في مراحل مختلفة من التطور إلى حدوث نخر خلقي أو متلازمة كلوية مقاومة للستيرويد. أنا J باتول. 2010 ؛ 177: 2225-2233.
33. Zou Z، Chung B، Nguyen T، et al. ربط الالتقام الخلوي بوساطة المستقبل وإشارات الخلية: دليل على التحلل البروتيني المنظم داخل الغشاء للميجالين في النبيبات القريبة. J بيول كيم. 2004 ؛ 279: 34302–34310.
34. Bertuccio C ، Veron D ، Aggarwal PK ، وآخرون. مستقبل عامل النمو البطاني الوعائي 2 تفاعل مباشر مع النيفرين يربط إشارات VEGF-A إلى الأكتين في خلايا الأقدام الكلوية. J بيول كيم. 2011 ؛ 286: 39933-39944.
35. Veron D، Aggarwal PK، Velazquez H، et al. VEGF الخاص بخلايا بودوسيت - اكتساب الوظيفة يؤدي إلى تصلب الكبيبات العقدي في الفئران الخالية من eNOS. J آم سوك نفرول. 2014 ؛ 25: 1814-1824.
36. Reidy KJ ، Aggarwal PK ، Jimenez JJ ، et al. semaphorin الزائدة podocyte {1}} يؤدي إلى مرض الكبيبات التي تنطوي على تفاعل plexinA 1- nephrin. أنا J باتول. 2013 ؛ 183: 1156-1168.
37. Tian X ، Kim JJ ، Monkley SM ، et al. يعتبر talin1 المرتبط بخلايا بودوسيت أمرًا بالغ الأهمية لصيانة حاجز الترشيح الكبيبي. ياء كلين إنفست. 2014 ؛ 124: 1098-1113.
38. Ni L، Saleem M، Mathieson PW. ثقافة بودوسيت: حيل التجارة. أمراض الكلى (كارلتون). 2012 ؛ 17: 525-531.
39. Ren XD، Kiosses WB، Schwartz MA. تنظيم بروتين Rho الصغير المرتبط بـ GTP عن طريق التصاق الخلية والهيكل الخلوي. EMBO J. 1999 ؛ 18: 578-585.
40. Duvall L، Rashmi P، Lopez-Rivera E، et al. ينظم التحلل البروتيني لـ Nck1 ولكن ليس Nck2 تنشيط RhoA وديناميكيات الأكتين. نات كومون. 2013 ؛ 4: 2863.
41. Kopp JB ، Winkler CA ، Zhao X ، وآخرون. المظاهر السريرية وعلم الأنسجة من صميم البروتين الشحمي 1- المصاحب لاعتلال الكلية في التجربة السريرية FSGS. J آم سوك نفرول. 2015 ؛ 26: 1443-1448.
42. كوروساكي T، Maquat LE. في لمحة سريعة تحلل الرنا المرسال الذي يتوسطه هراء في البشر. ي خلية العلوم. 2016 ؛ 129: 461-467.
43. MacArthur DG، Manolio TA، Dimmock DP، et al. مبادئ توجيهية للتحقيق في سببية متغيرات التسلسل في الأمراض التي تصيب الإنسان. طبيعة سجية. 2014 ؛ 508: 469-476.
44. Richards S ، Aziz N ، Bale S ، et al. المعايير والمبادئ التوجيهية لتفسير متغيرات التسلسل: توصية إجماع مشتركة للكلية الأمريكية لعلم الوراثة الطبية وعلم الجينوم ورابطة علم الأمراض الجزيئي. جينيه ميد. 2015 ؛ 17: 405-424.
45. Wang M ، Chun J ، Genovese G ، et al. مساهمات المتغيرات الجينية النادرة في متلازمة FSGS العائلية والمتفرقة. J آم سوك نفرول. 2019 ؛ 30: 1625–1640.
46. Karczewski KJ ، Francioli LC ، Tiao G ، et al. طيف القيد الطفري كميًا من الاختلاف في 141،456 شخصًا. طبيعة سجية. 2020 ؛ 581: 434-443.
47. Maddirevula S، Alzahrani F، Al-Owain M، et al. الزيجوت الذاتي وتأكيد الإنتاجية العالية لترشيح جينات المرض. جينيه ميد. 2019 ؛ 21: 736-742.
48. O'Connor E، Phan V، Cordts I، et al. يرتبط نقص MYO9A في الخلايا العصبية الحركية بانخفاض إفراز أجرين العصبي العضلي. همهمة مول جينيه. 2018 ؛ 27: 1434-1446.
49. Sárközy M، Zvara A، Gyémánt N، et al. تؤثر متلازمة التمثيل الغذائي على نمط التعبير الجيني القلبي عند مستوى النسخ في ذكور الجرذان ZDF. كارديوفاسك ديابيتول. 2013 ؛ 12:16.
50. Lepori N ، Zand L ، Sethi S ، et al. النمط الظاهري السريري والمرضي للأسباب الجينية لتصلب الكبيبات البؤري في البالغين. كلين كيدني ج .2018 ؛ 11: 179–190.
51. Eshbach ML، Weisz OA. الالتقام بوساطة مستقبلات في النبيبات القريبة. Annu Rev Physiol. 2017 ؛ 79: 425-448.
52. بوليجاند J ، دلمر B ، Heart AC ، وآخرون. عائلي مستقبلات الجلوكوكورتيكويد hploinsuinsuinsuinsuinsiovi عن طريق غير معنى بوساطة تسوس الرنا المرسال ، وتضخم الغدة الكظرية وزيادة ظاهري القشرانيات المعدنية. بلوس واحد. 2010 ؛ 5. e13563.
53. Yi F ، Kong R ، Ren J ، وآخرون. يعمل Myo9b-RhoGAP غير الكنسي على تسريع عملية التحلل المائي RhoA GTP بواسطة آلية ثنائية الأرجينين. J مول بيول. 2016 ؛ 428: 3043-3057.
54. Tian D ، Jacobo SM ، Billing D ، et al. التنظيم العدائي لديناميات الأكتين وحركة الخلية بواسطة قنوات TRPC5 و TRPC6. إشارة العلوم. 2010 ؛ 26: 3. ra77.
55. Wang L ، Ellis MJ ، Gomez JA ، et al. آليات بروتينية يسببها Rho GTPases. الكلى Int. 2012 ؛ 81: 1075-1085.
56. Kistler AD ، Altintas MM ، Reiser J. Podocyte GTPases تنظم ديناميات مرشح الكلى. الكلى Int. 2012 ؛ 81: 1053-1055.
57. كوري ج. مقايسة الجرح الخدش. طرق Mol Biol. 2011 ؛ 769: 25-30.
Kidney International (2021) 99 ، 1102-1117 ؛ https://doi.org/10.1016/ j.kint.2020.12.022
حقوق النشر ª 2 0 21 ، الجمعية الدولية لأمراض الكلى. تم النشر بواسطة Elsevier Inc. هذا مقال مفتوح الوصول بموجب ترخيص CC BY-NC-ND (http://creativecommons.org/licenses/by-nc-nd/4.0/).
المراسلات: Alda Tufro ، قسم طب الأطفال / أمراض الكلى ، كلية الطب بجامعة ييل ، 333 شارع سيدار ، نيو هافن ، كونيتيكت 06520 ، الولايات المتحدة الأمريكية. البريد الإلكتروني: alda.tufro@yale.edu 6 الانتماء الحالي: طب الكلى ، مستشفى الأطفال الوطني ، واشنطن العاصمة ، الولايات المتحدة الأمريكية. 7 الانتماء الحالي: أمراض الكلى ، مستشفى الأطفال المرضى ، جامعة تورنتو ، تورنتو ، أونتاريو ، كندا. تم استلامه في 21 مايو 2020 ؛ مراجعة 4 ديسمبر 2020 ؛ تم قبول 10 ديسمبر 2020 ؛ نُشر على الإنترنت في 4 يناير 2021