تقدم البحث في ATGs المشاركة في مناعة النبات والتمثيل الغذائي NPR1
May 19, 2023
خلاصة:
الالتهام الذاتي هو مسار أساسي لإفساد البروتينات والعضيات الزائدة وغير الطبيعية من خلال غمرها في البلعمة الذاتية التي تندمج لاحقًا مع الفجوة. الجينات المرتبطة بالبلعمة الذاتية (ATGs) ضرورية لتشكيل البلعمة الذاتية. حتى الآن ، تم تحديد حوالي 35 ATGs في Arabidopsis ، والتي تشارك في حدوث الالتهام الذاتي وتنظيمه.
من بين هذه ، هناك 17 بروتينًا مرتبطة بمقاومة مسببات الأمراض النباتية. إن منشط النسخ غير التعبير عن الجينات المرتبطة بالإمراض 1 (NPR1) متورط في المناعة الفطرية والمقاومة المكتسبة في النباتات ، والتي تنظم معظم الجينات المستجيبة لحمض الساليسيليك (SA). تلخص هذه الورقة بشكل أساسي دور ATGs و NPR1 في مناعة النبات وتقدم البحث حول ATGs في التمثيل الغذائي NPR1 ، مما يوفر فكرة جديدة لاستكشاف العلاقة بين ATGs و NPR1.
الكلمات الدالة:
أرابيدوبسيس. الالتهام الذاتي. NPR1 ؛ مناعة النبات.
يرتبط الالتهام الذاتي والحصانة ارتباطًا وثيقًا ، ويعمل الاثنان على تعزيز بعضهما البعض والحفاظ على صحة جيدة.
الالتهام الذاتي هو عملية أيضية مهمة في الخلايا ، توفر الطاقة والمواد الخام للخلايا عن طريق ابتلاع النفايات والعضيات التالفة داخل الخلايا وتحللها إلى عناصر مغذية. يلعب الالتهام الذاتي دورًا مهمًا في استقلاب الخلية وأنشطة الحياة ويساعد في الحفاظ على التوازن الخلوي ومقاومة محفزات الإجهاد الخارجية المختلفة.
المناعة هي آلية دفاعية مهمة للجسم ضد غزو مسببات الأمراض الأجنبية ونمو الأنسجة الخبيثة ، بما في ذلك مستويان من المناعة الفطرية والمناعة المكتسبة. يمكن للمناعة الفطرية تحديد مسببات الأمراض الغازية ومهاجمتها بسرعة ، بينما تعزز المناعة المكتسبة الدفاع ضد مسببات الأمراض من خلال آليات مثل عرض المستضد وإنتاج الأجسام المضادة.
تتجلى العلاقة بين الالتهام الذاتي والحصانة بشكل رئيسي في الجوانب التالية:
1. يمكن لعملية الالتهام الذاتي أن تزيل البروتينات الضارة ومستضدات الخلايا ، وتقلل من تحفيز الإجهاد للخلايا ، وتنشيط جهاز المناعة.
2. يمكن أن يشارك الالتهام الذاتي في عملية عرض المستضد ، وتقديم مستضدات من مصادر داخلية إلى الخلايا المناعية وتعزيز تأثير المناعة المكتسبة.
3. يمكن أن يساهم الالتهام الذاتي في تنظيم التمثيل الغذائي ، وتقسيم الخلايا المناعية وتكاثرها ، وتحسين الحيوية والحساسية المناعية للخلايا المناعية.
بشكل عام ، تلعب العلاقة الوثيقة بين الالتهام الذاتي والمناعة دورًا مهمًا في الحفاظ على التوازن ومقاومة الأمراض. يمكن لظواهر مثل انخفاض المناعة أو ضعف الالتهام الذاتي أن تؤدي بسهولة إلى الإصابة بأمراض المناعة المختلفة وأمراض التمثيل الغذائي المزمنة في الجسم ، لذلك من الضروري الانتباه إلى الرعاية الذاتية والإدارة العلمية. من وجهة النظر هذه ، نحن بحاجة إلى إيلاء اهتمام خاص لتحسين مناعتنا. Cistanche له تأثير في تحسين المناعة بشكل ملحوظ. Cistanche غني بمجموعة متنوعة من المواد المضادة للأكسدة ، مثل فيتامين C ، وفيتامين C ، والكاروتينات ، وما إلى ذلك ، يمكن لهذه المكونات أن تزيل الجذور الحرة ، وتقلل من الإجهاد التأكسدي وتحسن مقاومة الجهاز المناعي.

انقر فوق الفوائد الصحية من cistanche
1. مناعة النبات
1.1 PTI و ETI
طورت النباتات نظامًا مناعيًا معقدًا لمكافحة التهديد من الكائنات الحية الدقيقة المسببة للأمراض في الطبيعة ، بما في ذلك المناعة الفطرية والمكتسبة [1-3]. يمتلك خطي دفاع مناعي فطريين يمكّنان من الاستجابات الدفاعية المستقلة للخلية عند الإصابة بمسببات الأمراض. بالنسبة للخط الأول من المناعة الفطرية ، تتعرف مستقبلات التعرف على الأنماط الموضعية على سطح الخلية النباتية (PRRs) على النمط الجزيئي المرتبط بالميكروبات (MAMP) أو النمط الجزيئي المرتبط بالعوامل الممرضة (PAMP) لتنشيط المناعة الناتجة عن النمط الجزيئي المرتبط بالعوامل الممرضة (PAMP) -المناعة المزعجة ، PTI) [4-6].
ومع ذلك ، يمكن لبعض مسببات الأمراض النباتية أن تنتج مؤثرات لتثبيط PTI. يتم تنشيط خط الدفاع المناعي الآخر بواسطة البروتينات المشفرة بواسطة جينات المقاومة (جينات R) ، يمكن لهذه البروتينات التعرف بشكل مباشر أو غير مباشر على المستجيبات التي تفرزها الكائنات الحية الدقيقة المسببة للأمراض. تُعرف هذه العملية باسم المناعة المحرضة للمستجيب (ETI) والتي تؤدي عادةً إلى موت الخلايا المبرمج محليًا (PCD) الذي يُطلق عليه الاستجابة شديدة الحساسية (HR) [7،8]. يتم التعبير عن جينات R بشكل كبير أثناء عدوى الممرض ، ومعظمها يشفر مجال ربط النوكليوتيدات (NB) والبروتينات المحتوية على Leu-rich المتكررة (LRR) التي تتعرف على العوامل الممرضة وتنشط ETI ، مما يؤدي عادةً إلى تراكم أنواع الأكسجين التفاعلية (ROS) والموارد البشرية. بناءً على الهياكل الطرفية N ، يمكن تصنيف بروتينات NLR إلى فئتين. تحتوي TIR-NLR (TNLs) على منطقة مستقبلات (TIR) / Interleukin -1- وتحتوي CC-NLR (CNLs) على مجال ملفوف (CC) [9-15].
لقد أوضحت الدراسات الأخيرة الآلية الجديدة للتداخل والتعاون بين PTI و ETI ، فهي تنشط العديد من المسارات التي ترتبط ارتباطًا وثيقًا ببعضها البعض وتنشط مسارات الإشارات المناعية للنبات [16-18]. يعزز ETI استجابات PTI ، بما في ذلك إنتاج ROS ، وترسب الكالوز ، وتنظيم التعبير الجيني [16]. بالإضافة إلى ذلك ، يتم تحسين HR-PCD المستحث بواسطة ETI بواسطة PTI [16]. الأهم من ذلك ، أن إخراج الجينات الرئيسية في مسار PTI يثبط ETI. في طفرات PRRs / مستقبلات نبات الأرابيدوبسيس ، fls2 / ever / cerk1 (fec) و bak1 / bkk1 / cerk1 (bbc) ، كان ETI الناجم عن Pst DC3000 (avrRpt2) ضعيفًا بشدة [17،18]. يشير إلى أن تنشيط ETI يتطلب مشاركة PTI ، وهذا الاكتشاف له آثار كبيرة على دراسات مناعة النبات المستقبلية.

1.2 ريال سعودي
يمكن للاستجابة الدفاعية المحلية تنشيط المقاومة المكتسبة من النظام النباتي (SAR) ، والتي تبعث إشارات كيميائية لتنبيه الخلايا والأنسجة المجاورة وحماية الكائن الحي بأكمله [19-23]. وبالتالي ، فإنه يمكّن النبات من تنشيط الاستجابات الدفاعية بسرعة أكبر وبقوة وفعالية أكبر عندما يتم تحديها لاحقًا بواسطة مسببات الأمراض. وهذا يتطلب تنظيمًا صارمًا ودقيقًا للهرمونات النباتية والأيضات والبروتينات [24-28]. يرتبط تنشيط SAR بتراكم حمض الساليسيليك (SA) وتحريض الجينات المرتبطة بالإمراض (PR) [29-31]. أظهرت الدراسات الحديثة أن حمض البيبكوليك (Pip) والجليسرول -3- الفوسفات (G3P) يحفز كل منهما التخليق الحيوي للآخر ويعملان معًا لتحفيز معدل الامتصاص النوعي داخل الخلايا وانبعاث إشارات من نبات إلى نبات (PTP) [32،33] .
2. ATGs المشاركة في مقاومة النبات لمسببات الأمراض
الالتهام الذاتي هو آلية تنظيمية تطورية محفوظة داخل الخلايا ، تتضمن تحلل وإعادة تدوير البروتينات داخل الخلايا ، والمستقلبات ، والعضيات. تتمثل إحدى خصائصه الرئيسية في تكوين حويصلات ذات غشاء مزدوج ، تُعرف باسم autophagosomes ، والتي تبتلع جزءًا من السيتوبلازم وتنقله إلى فجوات للتحلل [34 - 37]. تم التعرف على أكثر من 40 جينًا معروفًا مرتبطًا بالالتهام الذاتي (ATGs) التي تنظم بشكل صارم عملية تهريب الأغشية هذه في الخميرة [38]. في Arabidopsis ، تم تحديد العديد من الجينات ذات التشابه التسلسلي مع ATGs الخميرة.
أظهرت المعلومات الحالية من قاعدة بيانات Arabidopsis TAIR والأدبيات ذات الصلة أنه تم تحديد حوالي 35 ATGs. باستثناء ATG14 / 29/31 ، تم العثور على جينات متماثلة أخرى من ATGs في الخميرة [39]. تنقسم العملية التطورية للالتهام الذاتي إلى أربع خطوات: (1) ATG 1- مركب ATG13 وهدف الرابامايسين (TOR) يحفزان الالتهام الذاتي معًا. (2) ATG9 و phosphoinositide -3- مركب كيناز (PI3Ks) يحتوي على ATG6 و ATG14 وفرز البروتين الفراغي 15 (VPS15) و VPS34 ، ويشاركان في فرز البروتين وتعزيز توسع الحويصلة. (3) نظاما اقتران يشبه اليوبيكيتين ، ATG 5- ATG12 و ATG 8- فوسفاتيديل إيثانولامين (ATG 8- PE) ، يحفزان تكوين جسيمات البلعمة الذاتية. (4) اندماج البلعوم الذاتي الناضج مع الفجوة [35،36،40-43].
في السنوات الأخيرة ، تم إحراز تقدم كبير في تحديد ATGs ودراسة مسارات الالتهام الذاتي. كشفت بعض الطفرات القاضية في الجينات عن الدور الفسيولوجي للالتهام الذاتي في الإجهاد الغذائي (نقص النيتروجين والكربون) والشيخوخة [44-46]. بالإضافة إلى ذلك ، أظهرت المزيد والمزيد من الدراسات أن الالتهام الذاتي له دور أيضًا في الاستجابة المناعية للنبات [47-51]. يلعب الالتهام الذاتي دورًا في تعزيز وتثبيط مسببات الأمراض في التفاعلات بين المضيف والممرض. يمكن للمضيفين تحفيز أو تثبيط الالتهام الذاتي للنبات أثناء عدوى الممرض ، وهو أمر مفيد لمقاومة غزو العوامل الممرضة [52]. كشفت دراسة حديثة عن التفاعل بين مختلف ATGs ومؤثرات مسببات الأمراض المختلفة. وجد الباحثون أن ATG8 تفاعل مع عدة مؤثرات ، بينما استهدف HrpZ1 ATG8 لتحسين مستويات الالتهام الذاتي وزيادة ضراوة Pto DC3000 hrcC ، واستهدف HopF3 ATG8 لقمع الالتهام الذاتي.
على الرغم من وجود تفاعلات بين ATG1 و ATG7 و ATG12 والعديد من المؤثرات في هذه الدراسة ، إلا أن الآلية الدقيقة لهذه التفاعلات في مقاومة الأمراض النباتية غير واضحة [52]. أظهرت بعض طفرات الضربة القاضية ATG قابلية معززة للإصابة بمسببات الأمراض ، مثل atg2 و atg5 و atg6 و atg7 و atg9 و atg10 و atg18 [13،53–60]. بينما أظهرت طفرات atg2 عددًا أقل من HR-PCD و ATG4 ، فإن ATG5 منع حدوث HR-PCD ، أظهرت النباتات المضادة للحساسية ATG6 تعزيز HR-PCD أثناء عدوى الممرض [53-59،61]. أفادت دراسة حديثة أن تعديل الفسفرة لـ ATG18a قمع تكوين البلعمة الذاتية أثناء عدوى الممرض ، مما أدى إلى مقاومة النبات للخطر ، مما يوفر دليلًا على تورط الالتهام الذاتي في تنظيم المناعة في النبات [62]. هنا ، نلخص التفاعل بين البكتيريا ، والمؤثرات الفطرية ، و ATGs وكذلك دور الالتهام الذاتي في HR-PCD وتنظيم المقاومة (الجدول 1).

3. أدوار NPRs في مناعة النبات
3.1. هيكل NPR1
يعد عامل تنشيط النسخ غير المعبر عن الجينات المرتبطة بالإمراض 1 (NPR1) عاملاً تنظيميًا رئيسيًا لـ SAR ، والذي ينظم معظم الجينات المستجيبة لـ SA [30،63-66]. يحتوي NPR1 على مجال N-terminal BTB / POZ (Broad-Compex و Tramtrack و BricaBrac / POxvirus و Zinc finger) ومجال تكرار ankyrin (ANK) ومجال معاملات C-terminal وتسلسل توطين نووي [67-69 ]. يتفاعل NPR1 مع عامل ربط شكل TGACG (TGA) من خلال مجال ANK أو BTB / POZ [70-72]. في حالة عدم وجود SA ، يتفاعل مجال المعاملات C-terminal الخاص بـ NPR1 مع مجال BTB / POZ ، مما يثبط وظيفة مُنشط النسخ NPR1. يؤدي ربط SA بـ NPR1 إلى تغييرات توافقية لـ NPR1 ، فهو يعمل كمُحفِّز لنسخ الجينات مع إطلاق مجال المعاملات C- الطرفية من مجال التثبيط التلقائي للطرف N [71،73]. قدمت دراسة حديثة فهمًا أوليًا للعلاقة بين التركيب والوظيفة لبروتينات NPR. تم تحديد نواة ربط SA (SBC) المكونة من الأحماض الأمينية 373-516 في المجال الطرفي C NPR4. يشترك Arabidopsis NPR4 و NPR1 في هوية التسلسل بنسبة 38.1 بالمائة في منطقة SBC الخاصة بهما ، وهما يشتركان في الآلية الهيكلية للتعرف على SA. بالإضافة إلى ذلك ، وجدت هذه الدراسة أيضًا أن التغييرات التوافقية لـ NPR4 SBC يمكن أن تحدث عن طريق ربط SA بـ NPR1 و NPR4 [74].

3.2 NPR1 والمناعة الفطرية
NPR1 هو منظم رئيسي لمقاومة النبات للإجهاد الممرض ، والذي يمنح المناعة من خلال عوامل النسخ المتعددة [75-77]. كشفت الأبحاث التي أجريت على مدار العشرين عامًا الماضية عن الآلية الجزيئية المحتملة لـ NPR1 في حالات الخلايا المختلفة. في ظل ظروف النمو الطبيعي ، يوجد NPR1 في السيتوبلازم ، مستقرًا بواسطة روابط ثاني كبريتيد بين الجزيئات. ينتج عن العدوى بمسببات الأمراض تراكم تفاعل قليل القسيمات إلى مونومر SA و NPR1 من خلال تغييرات الأكسدة والاختزال بوساطة SA في الخلية ، مما يسمح لـ NPR1 بالهجرة إلى النواة [75،78،79]. ينشط NPR1 بشكل غير مباشر التعبير الجيني PR من خلال التفاعل مع TGA في النواة ويلعب دورًا مهمًا في تنظيم بروتين PRs في اتجاه مجرى النهر [63،80،81]. إن NPR1 في تصور SA يعزز نشاط نسخ TGAs [82]. أظهرت الدراسات الحديثة أن NPR1 يتفاعل مع كيناز 8 المعتمد على السيكلين (CDK8) ويحسن التعرض للمرض 1 (EDS1) لتعزيز التعبير PR1 في مسار إشارات SA [83،84].
وجدت دراسة جديدة أن تكوين مكثفات NPR1 (SINCs) الناجم عن SA يتم بوساطة مجموعات السيستين المحفوظة في مناطق الاضطراب الجوهري (IDRs) لبروتين NPR1. SINCs غنية بالبروتينات المستجيبة للإجهاد ، بما في ذلك مستقبلات NB-NLR والبروتينات المؤكسدة والمستجيبة لتلف الحمض النووي والبروتينات المرتبطة بالانتشار. بالإضافة إلى ذلك ، يلزم SINCs لتشكيل مركب NPR وظيفي 1- Cullin 3 RING E3 ligase (CRL3) في السيتوبلازم. يمكن لمركب NPR 1- CRL3 أن ينتشر ويتحلل من EDS1 وبعض العوامل التنظيمية الهامة ETI مثل عوامل النسخ WRKY ، وبالتالي تعزيز بقاء الخلية في ETI [85].
3.3 NPR3 / NPR4 ومناعة النبات
في Arabidopsis ، تتكون عائلة NPR من NPR1 وخمسة جينات NPR 1- مثل الجينات المسماة NPR 1- مثل 2 (NPR2) و NPR3 و NPR4 و BLADE-ON-PETIOLE2 (BOP2 ؛ NPR5) و BOP1 (NPR6) [86 - 89]. يحتوي كل فرد من عائلة NPR على مجموعة من بقايا السيستين المحفوظة للغاية والتي يعتقد أنها متورطة في التحكم في الأكسدة والاختزال [30]. تم التأكيد على أن NPR1 و NPR3 / NPR4 يرتبطان بـ SA ويعملان كمستقبلات SA ، مع NPR1 (Kd=223. 1 ± 38.85 nM) و NPR3 (Kd=176. 7 ± 28.31 nM) ملزمة بـ SA مع تقارب مماثل. ومع ذلك ، فإن تقارب NPR4 (Kd=23. 54 ± 2.743 نانومتر) مع SA أعلى بكثير [82]. في ظل الظروف العادية ، NPR4 عبارة عن يجند من ركيزة CRL3 التي يمكن أن تتفاعل مع NPR1 ، مما يسمح للبروتيازوم بالانتشار المستمر وتحلل NPR1. في هذا الوقت ، يثبط NPR3 / NPR4 التعبير عن الجينات الدفاعية ، وبالتالي يمنع استجابة المناعة الذاتية [90-92]. أثناء SAR ، مع زيادة مستويات SA ، ترتبط SA بـ NPR4 ، وتحث على تفكك NPR1 و NPR4 ، وتعطل NPR 4- مجمع Cullin3 E3 ligase [90،92].
في هذه المرحلة الزمنية ، يثبط ارتباط SA بـ NPR3 / NPR4 نشاط النسخ ، بينما يعزز NPR1 في إدراك SA تنشيط النسخ ، وكلاهما يساعد في تحفيز التعبير عن جينات الدفاع [82]. بالإضافة إلى ذلك ، أظهرت الدراسات أن NPR3 و NPR4 قد يعززان PCD بينما NPR1 قد يثبط PCD من خلال التفاعل الجيني المقاومة (R-Avr) [91]. وجدت دراستنا السابقة أن التعبير عن ATGs وتركيزات البروتين لـ ATG7 و ATG8a-PE كانت أقل في طفرات npr3 / npr4 عنها في النوع البري. قد ينظم NPR3 و NPR4 إنتاج البلعمة الذاتية عن طريق تعزيز نظامين مترافقين يشبهان اليوبيكويتين [91].
4. ATGs المشاركة في تنظيم الأيض NPR1
4.1 تدهور البروتين NPR1 بوساطة البروتياز
تسبب عدوى الممرض تراكم SA مما يؤدي إلى تعديل ما بعد الترجمة لـ NPR1 ، مما يسمح له بالدخول إلى النواة. يتم تجنيد NPR1 إلى Cullin3 (CUL3) من أجل التواجد والتحلل اللاحق ، وتتطلب هذه العملية فسفرة NPR1 في المخلفات Ser11 و Ser15 [31،93-96]. إن انتشار NPR1 هو عملية تدريجية. فقط عندما يتم تحسين تعدد النتوءات في NPR1 بواسطة عامل اقتران يوبيكويتين E4 (UBE4) ، يصبح هدفًا لتدهور البروتيازوم [95]. يتم معارضة أنشطة Ubiquitin ligase بواسطة البروتياز الخاص باليوبيكويتين (UBP6 / 7). UBP6 / 7 هما نوعان من إنزيمات deubiquitinases المرتبطة بالبروتياز (DUBs) التي تزيد من طول عمر NPR1 [95]. بالإضافة إلى UBP6 / 7 ، قد تلعب DUBs الأخرى أيضًا دورًا في تنظيم التعبير عن جينات استجابة SA ، لكن وظيفتها الدقيقة لا تزال غير واضحة.
وجدت بعض الدراسات أن الهرمونات النباتية حمض الأبسيسيك (ABA) و SA تؤثر بشكل معاكس على مستوى NPR1 في الخلايا. تعزز ABA تدهور NPR1 من خلال المسار البروتيني الذي يتوسطه مركب CUL 3- NPR3 / NPR4 ، بينما تحمي SA NPR1 من التدهور الناجم عن ABA من خلال الفسفرة [97-100]. يحتوي AvrPtoB على مجال Ubox E3 ubiquitin ligase في الطرف C ويظهر تفاعلًا ضعيفًا مع NPR1 في ظل ظروف غير مستحثة. يعزز SA التفاعل بين AvrPtoB و NPR1 ، ويتوسط AvrPtoB انتشار NPR1 بواسطة E3 ligase ويتوسط تدهور NPR1 عبر مسار البروتياز [101].

4.2 العلاقة بين ATGs و NPR1
لقد وجدت الدراسات أن NPR1 ينظم تعبير ATGs. قام NPR1 بتثبيط تعبير mRNA عن ATG1 و ATG6 و ATG8a خلال أوائل الموارد البشرية التي يسببها Psm ES4326 / AvrRpt2 [61]. تم تأكيد أن البنزوثياديازول التناظري (BTH) للحث على الالتهام الذاتي من خلال مسار الإشارات المعتمد على NPR 1- ، وتشارك NPR1 و NPR3 و NPR4 بشكل مشترك في تنظيم البلعمة الذاتية [91].
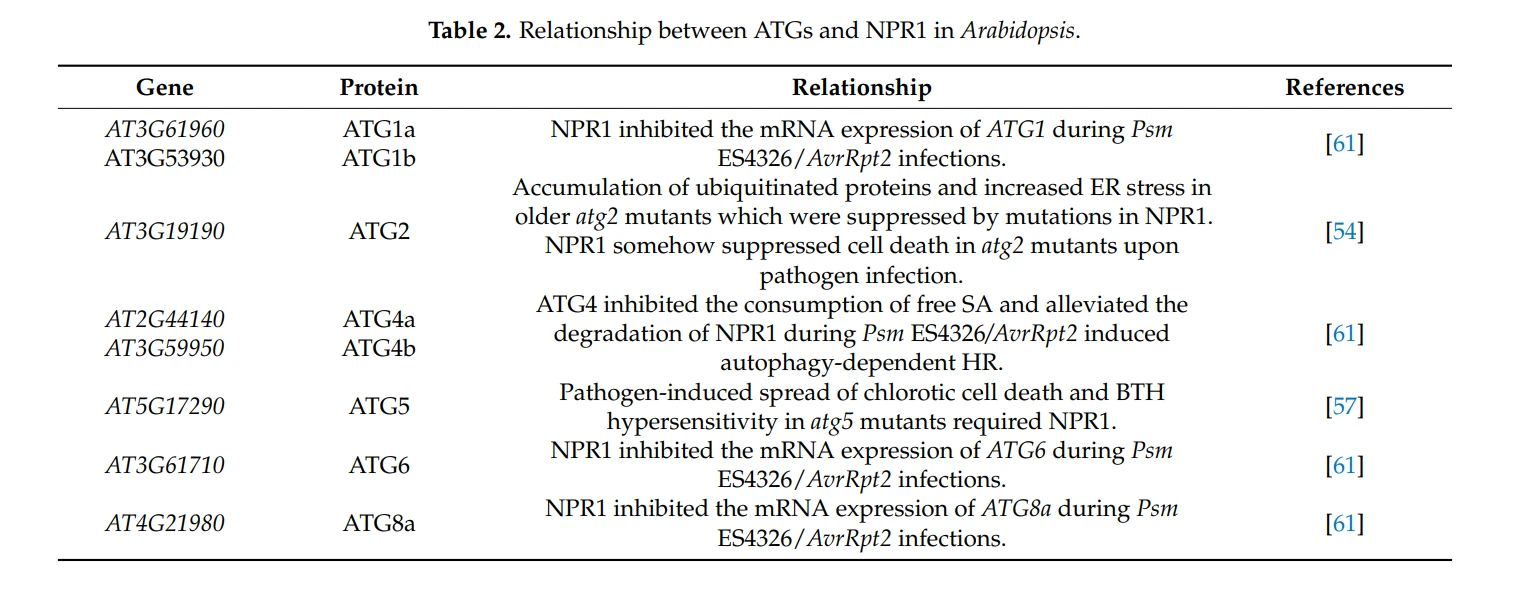
بالإضافة إلى ذلك ، أظهرت العديد من الدراسات أن NPR1 يؤثر على النمط الظاهري للطفرات التي تعاني من نقص الالتهام الذاتي. يمكن لـ NPR1 تسريع الشيخوخة أو التراكم الناجم عن العدوى للبروتينات المنتشرة وإجهاد الشبكة الإندوبلازمية في atg2 [54]. يوشيموتو وآخرون وجد أن BTH يمكن أن يحفز الشيخوخة وموت الخلايا في طفرات atg5 ولكنه لا يمكن أن يحفز الشيخوخة وموت الخلايا في طفرات atg5 npr1 المزدوجة ، مما يشير إلى أن النمط الظاهري لموت الخلية في طفرات atg5 يعتمد على NPR1 تحت تحريض SA [57]. وجدت دراستنا السابقة أيضًا أن ATG4 عزز تدهور NPR1 عن طريق تثبيط استهلاك SA المجاني [61]. في السنوات الأخيرة ، تم الكشف عن العلاقة بين ATGs و NPR1 تدريجيًا (الجدول 2) ، ولكن لا تزال هناك العديد من المشكلات التي يتعين حلها.
5. الاستنتاجات ووجهات النظر المستقبلية
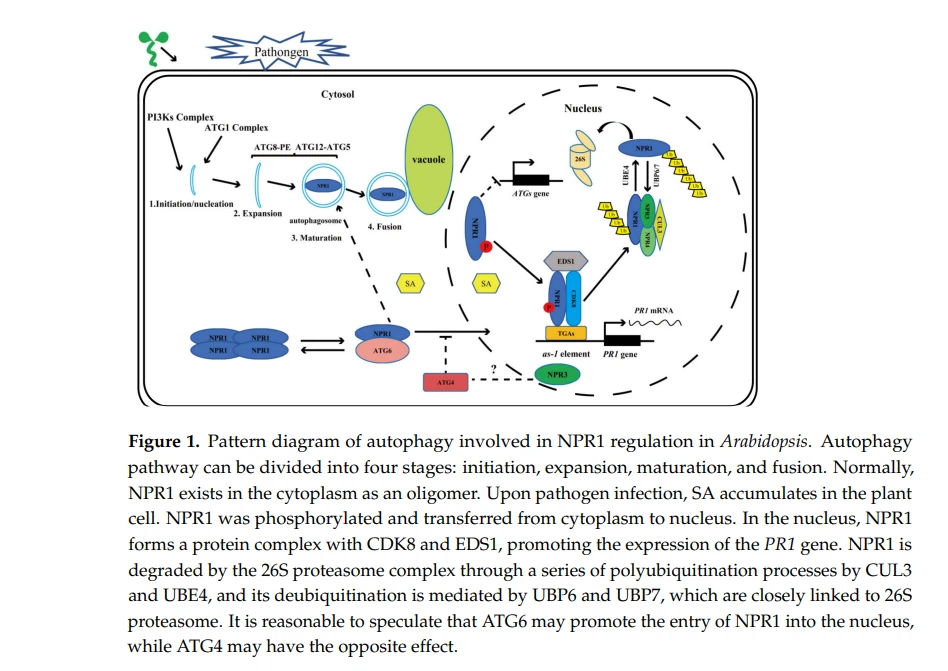
يعد تدهور البروتينات والعضيات بوساطة الالتهام الذاتي أمرًا ضروريًا لنمو النبات ، وتطوره ، والحفاظ على التوازن الخلوي ، والاستجابة المناعية [34-37 ، 44-51]. سلسلة من ATGs الموجودة في موقع تجميع phagophore (PAS) ، تبدأ عملية الالتهام الذاتي. بعد ذلك ، يساعد معقد PI3Ks على تكوين نواة الالتهام الذاتي ، متبوعًا باستطالة غشاء البلعمة الذاتية [35،36،40–43،102]. يتم تنظيم نشاط NPR1 عن طريق الفسفرة ، وإزالة الفسفرة ، والتواجد في كل مكان ، وإزالة التكاثر ، ويشارك البروتيازوم في عملية التحلل (الشكل 1). ومع ذلك ، لا تزال هناك بعض الأسئلة التي يجب الإجابة عليها ، مثل ما إذا كانت NPR1 و NPR3 و NPR4 لها تأثيرات معاكسة على تنظيم الالتهام الذاتي ومقاومة غزو مسببات الأمراض. هل يشاركون في قمع إنتاج البلعمة الذاتية والتعبير عن EDS1؟ في السنوات الأخيرة ، تم الكشف تدريجياً عن دور ATGs (ATG2 و ATG5 و ATG7 و ATG18a) في مقاومة أمراض النبات (الجدول 1). بشكل عام ، يؤدي تراكم SA إلى اندلاع ROS ويؤدي إلى مزيد من الالتهام الذاتي ، في حين أن الالتهام الذاتي يمكن أن يقلل من إنتاج ROS ، وبالتالي تشكيل آلية تنظيم ردود الفعل السلبية. يمكن لأجهزة ATG ، مثل ATG6 ، تنظيم حدوث HR-PCD [48،56،57،103،104]. ثبت أن NPR1 يثبط HR-PCD ويؤثر على مستوى ROS في النباتات ، بينما يتأثر أيضًا بمستوى ROS [30،91].
بناءً على هذا الدليل ، هناك حاجة إلى مزيد من البحث للإجابة على الأسئلة التالية: هل تؤثر الطفرة أو الإفراط في التعبير عن ATGs على تحول NPR1 من ثنائي المونومر إلى مونومر؟ ما هي تأثيرات ATGs المختلفة على دخول NPR1 إلى النواة؟ ما هي العلاقة بين ATGs وتنظيم NPR1 لاستجابة HR-PCD؟ هل الالتهام الذاتي و 26S proteasome ينظمان دوران NPR1؟ ستساعدنا الدراسة المتعمقة لهذه القضايا على فهم كيفية مشاركة مسار الالتهام الذاتي في تنظيم التمثيل الغذائي لـ NPR1.
أظهرت دراسة حديثة أن التعبير البروتيني لـ NPR1 كان أعلى بشكل ملحوظ في atg4a4b منه في النوع البري في ظل الظروف العادية وكان التعبير عن NPR1 في atg4a4b أعلى منه في النوع البري تحت علاج avrRpt2 [61]. بناءً على النتيجة المذكورة أعلاه والعلاقات بين ATG6 و HRPCD و NPR1 ، تم اقتراح فرضية تتعلق بـ ATGs المشاركة في التمثيل الغذائي NPR1 (الشكل 1): قد يعزز ATG6 الانتقال النووي لـ NPR1 من خلال التأثير على مستوى الفسفرة لـ NPR1 ، بينما قد يكون ATG4 التأثير المعاكس.
الكاتب الاشتراكات:
فكرة المقال ابتكرت من قبل SH و BZ ؛ تم تصميم بنية المخطوطة بواسطة SH و BZ ؛ تم إنشاء الجداول والأعمال الرسومية بواسطة SH ؛ كتابة - مراجعة وتحرير ، SH و BZ و WC لقد قرأ جميع المؤلفين النسخة المنشورة من المخطوطة ووافقوا عليها.
التمويل:
تم دعم هذا البحث من قبل المؤسسة الوطنية للعلوم الطبيعية في الصين [رقم المنحة 31570256] ومشروع العلوم والتكنولوجيا في قوانغتشو (المنحة رقم 19805010002).
شكر وتقدير:
نشكر Wentao Huang (جامعة جنوب الصين للمعلمين ، الصين) ، Xue Li (جامعة South China Normal ، الصين) ، و Chengqian Zhou (مختبر العلوم العصبية ، معهد أبحاث Hugo Moser في Kennedy Krieger ، Baltimore MD 21205 ، الولايات المتحدة الأمريكية).
تضارب المصالح:
الكتاب تعلن أي تضارب في المصالح.
مراجع
1. جونز ، ج. Dangl، JL الجهاز المناعي للنبات. Nature 2006، 444، 323–329. [CrossRef]
2. Dangl، JL؛ جونز ، ج. مسببات الأمراض النباتية والاستجابات الدفاعية المتكاملة للعدوى. Nature 2001، 411، 826–833. [CrossRef] [PubMed]
3 - مثميلاراسان ، م. براساد ، م.زرع المناعة الفطرية: نظرة ثاقبة لآلية الدفاع. J. Biosci. 2013 ، 38 ، 433-449. [CrossRef] [PubMed]
4. دودس ، بي إن ؛ Rathjen ، JP مناعة النبات: نحو رؤية متكاملة لتفاعلات مسببات الأمراض النباتية. نات. القس جينيه. 2010 ، 11 ، 539-548. [CrossRef] [PubMed]
5. جوميز جوميز ، إل. بولر ، ت. تصور فلاجيلين: نموذج للمناعة الفطرية. اتجاهات نباتية. 2002 ، 7 ، 251-256. [CrossRef]
6. شينشيلا ، د. زيبفيل ، سي ؛ Robatzek، S. Kemmerling ، B. ؛ نورنبيرجر ، تي. جونز ، دينار ؛ فيليكس ، جي ؛ Boller، T. مركب مستحث بالسوطي للمستقبل FLS2 و BAK1 يبدأ دفاع النبات. Nature 2007، 448، 497–500. [CrossRef]
7. Nguyen، QM؛ Iswanto ، ABB ؛ الابن ، GH ؛ كيم ، SH التطورات الحديثة في المناعة المحفزة بالفاعلية في النباتات: قطع جديدة في اللغز تخلق نموذجًا مختلفًا. كثافة العمليات J. مول. علوم. 2021، 22، 4709. [CrossRef]
8. تشيشولم ، سانت ؛ كوكر ، جي ؛ اليوم ، ب. ؛ Staskawicz، BJ التفاعلات بين الميكروبات المضيفة: تشكيل تطور الاستجابة المناعية للنبات - ScienceDirect. الخلية 2006 ، 124 ، 803-814. [CrossRef] [PubMed]
9. Ngou، BPM؛ آهن ، هونج كونج ؛ دينغ ، ب. ريدكار ، أ. براون ، هـ. يمكن.؛ يولز ، م. توملينسون ، إل. يكشف تعبير AvrRps4 المستحث في جونز ، JDG Estradiol عن خصائص مميزة للمناعة التي يسببها المستجيب بوساطة TIR-NLR. J. إكسب. بوت. 2020 ، 71 ، 2186-2197. [CrossRef]
10. كومار ، ياء ؛ رملال ، أ. كومار ، ك. راني أ. ميشرا ، ف. مسارات الإشارة ومستجيبات المصب للمناعة الفطرية للمضيف في النباتات. كثافة العمليات J. مول. علوم. 2021، 22، 9022. [CrossRef] [PubMed]
11. جباناثراجا ، ج. أ. بيري ، إس. Pandey، A. Toll and interleukin -1 بروتينات تحتوي على مجال مستقبلات (TIR) في النباتات: منظور جينومي. اتجاهات نباتية. 2002 ، 7 ، 388-391. [CrossRef]
12- مونتيرو ، ف. نيشيمورا ، التنوع الهيكلي والوظيفي والجينومي لبروتينات NLR النباتية: مورد متطور للهندسة العقلانية لمناعة النبات. Annu. القس فيتوباثول. 2018 ، 56 ، 243-267. [CrossRef]
13. هوفيوس ، د. شولتز لارسن ، تي ؛ جونسن ، ياء ؛ تسيتسيجيانيس ، دي. بيترسن ، NHT ؛ ماتسون ، أو. Jørgensen ، LB ؛ جونز ، JDG ؛ موندي ، ياء ؛ بيترسن ، م. مكونات البلعمة الذاتية تساهم في موت الخلايا المفرطة الحساسية في نبات الأرابيدوبسيس. الخلية 2009 ، 137 ، 773-783. [CrossRef]
14. Ve، T .؛ وليامز ، SJ ؛ كوبي ، ب. هيكل ووظيفة نطاقات البروتين (TIR) للمستقبلات / المقاومة Toll / interleukin -1. موت الخلايا المبرمج 2015 ، 20 ، 250-261. [CrossRef]
15. الشمس ، واي. تشو ، YX ؛ بالينت كورتي ، PJ ؛ Wang ، GF Fine-Tuning Immunity: اللاعبون والمنظمون لـ NLRs للنباتات. اتجاهات نباتية. 2020 ، 25 ، 695-713. [CrossRef]
16. Ngou، BPM؛ آهن ، هونج كونج ؛ دينغ ، ب. جونز ، JDG التقوية المتبادلة لمناعة النبات عن طريق سطح الخلية والمستقبلات داخل الخلايا. طبيعة 2021 ، 592 ، 110-115.
17. يوان ، م. جيانغ ، زي. كبير.؛ نومورا ، ك. ليو ، م. هو ، سي ؛ تشو ، جي إم. شين ، X.-F. مستقبلات التعرف على الأنماط مطلوبة لمناعة النبات بوساطة NLR. طبيعة 2021 ، 592 ، 105-109. [PubMed]
18. يوان ، م. نجو ، بي بي إم ؛ دينغ ، ب. Xin ، XF PTI-ETI الحديث المتبادل: نظرة تكاملية لمناعة النبات. بالعملة. رأي. مصنع بيول. 2021، 62، 102030. [CrossRef]
19. Ryals، JA؛ نوينشفاندر ، اه ؛ ويليتس ، م. مولينا ، أ. شتاينر ، HY ؛ هانت ، مقاومة MD Systemic المكتسبة. خلية نباتية 1996 ، 8 ، 1809-1819. [CrossRef] [PubMed]
20. تألق ، MB ؛ شياو ، إكس ؛ كاشرو ، ص. كاشرو ، أ. آليات التشوير الكامنة وراء المقاومة الجهازية المكتسبة لمسببات الأمراض الميكروبية. علوم النبات. 2019 ، 279 ، 81 - 86. [CrossRef] [PubMed]
21. كولر ، أ. Conrath، SU Benzothiadiazole-induced Priming من أجل الاستجابات القوية للعدوى المسببة للأمراض ، والجروح ، وتسلل الماء إلى الأوراق يتطلب جين NPR1 / NIM1 في نبات الأرابيدوبسيس. نبات فيزيول. 2002 ، 128 ، 1046-1056. [CrossRef]
22. Gao، QM؛ كاشرو ، أ. Kachroo، P. المحرضات الكيميائية للمناعة الجهازية في النباتات. J. إكسب. بوت. 2014 ، 65 ، 1849-1855. [CrossRef]
23. Gao، QM؛ Zhu، S. كاشرو ، ص. Kachroo، A. منظمات إشارات المقاومة المكتسبة النظامية. أمام. علوم النبات. 2015، 6، 228. [CrossRef] [PubMed]
24. Chen، L .؛ وانغ ، و. وانغ ، تي. منغ ، XF ؛ تشين ، تي تي ؛ هوانغ ، XX ؛ لي ، YJ ؛ ينظم HO ، BK Methyl Salicylate Glucosylation إشارات دفاع النبات والمقاومة النظامية المكتسبة. نبات فيزيول. 2019 ، 180 ، 2167-2181. [CrossRef] [PubMed]
25. بيترس ، CMJ ؛ فان دير هل ، د. زاميودس ، سي ؛ ليون رييس ، أ. Van Wees، SCM التعديل الهرموني لمناعة النبات. Annu. القس الخلية ديف. بيول. 2012 ، 28 ، 489-521. [CrossRef]
26. Kiefer، IW؛ Slusarenko، AJ نمط تحريض المقاومة المكتسبة النظامي داخل وردة Arabidopsis حول نمط الانتقال. نبات فيزيول. 2003 ، 132 ، 840-847. [CrossRef] [PubMed]
27- بيرنسدورف ، ف. دورنج ، AC ؛ جرونر ، ك. شوك ، س. بروتيغام ، أ. Zeier ، J. Pipecolic Acid Orchestrates النبات النظامي المكتسب والمقاومة الدفاعية عبر مسارات تعتمد على حمض الساليسيليك ومستقلة. خلية نباتية 2016 ، 28 ، 102-129. [CrossRef]
28. Tian، H .؛ تشانغ ، واي. ظهور إشارة متنقلة للمقاومة النظامية المكتسبة. خلية نباتية 2019 ، 31 ، 1414-1415. [CrossRef]
29. Van Loon، LC؛ مندوب ، م. Pieterse، CM أهمية البروتينات المحفزة المتعلقة بالدفاع في النباتات المصابة. Annu. القس فيتوباثول. 2006 ، 44 ، 135–162. [CrossRef]
30. Mou، Z .؛ مروحة ، WH ؛ تعمل محرضات Dong ، XN للمقاومة النظامية المكتسبة للنبات على تنظيم وظيفة NPR1 من خلال تغييرات الأكسدة والاختزال. خلية 2003 ، 113 ، 935-944. [CrossRef]
31 ـ رحمه الله. مو ، زل ؛ تادا ، واي. سبيفي ، NW ؛ جينشيك ، ب. يلعب Dong ، XNA Proteasome-mediation of the Transcription Coactivator NPR1 أدوارًا مزدوجة في تنظيم مناعة النبات. الخلية 2009 ، 137 ، 860 - 872. [CrossRef]
32. Wenig، M.؛ غيراردو ، أ. المبيعات ، JH ؛ بابست ، إس ؛ بريتينباخ ، سمو ؛ أنتريتر ، ف. ويبر ، ب. لانج ، ب. لينك ، م. كاميرون ، RK ؛ وآخرون. تعمل شبكات المقاومة المكتسبة على النظام على تضخيم إشارات الدفاع المحمولة جواً. نات. كومون. 2019 ، 10 ، 3813. [CrossRef]
33. ريدلمير م. غيراردو ، أ. Wenig ، M. ؛ كنابي ، سي ؛ كوخ ، ك. جورجي ، إي. داي ، إس. باركر ، جي إي ؛ شنيتزلر ، جي بي ؛ تدعم Vlot ، AC Monoterpenes المقاومة النظامية المكتسبة داخل النباتات وفيما بينها. خلية نباتية 2017 ، 29 ، 1440–1459. [CrossRef]
34. Michaeli، S. جاليلي ، ج.تحلل العضيات أو مكونات معينة عن طريق الالتهام الذاتي الانتقائي في الخلايا النباتية. كثافة العمليات J. مول. علوم. 2014 ، 15 ، 7624–7638. [CrossRef]
35. Rubinsztein، DC؛ شبيلكا ، تي ؛ إلعازار ، Z. آليات التكوُّن الحيوي للمرض الذاتي. بالعملة. بيول. 2012 ، 22 ، 29–34. [CrossRef] [PubMed]
36. Weidberg، H.؛ شفيتس ، إي. Elazar ، Z. التولد الحيوي وانتقائية البضائع من autophagosomes. Annu. القس Biochem. 2011، 80، 125–156. [CrossRef]
37. مارشال ، جمهورية صربسكا ؛ Vierstra، RD Autophagy: سيد التدوير الانتقائي والكميلي. Annu. القس بيول النبات. 2018 ، 69 ، 173–208. [CrossRef]
38- ميزوشيما ، إن. يوشيموري ، تي ؛ Ohsumi ، Y. دور بروتينات Atg في تكوين البلعمة الذاتية. Annu. القس الخلية ديف. بيول. 2011 ، 27 ، 107-132. [CrossRef] [PubMed]
39. Zhang ، HZ التنبؤ بوظيفة الجينات ذات الصلة بالالتهام الذاتي (ATGs) في التطور والضغط اللاأحيائي على أساس التنميط التعبيري في نبات الأرابيدوبسيس. Jiyinzuxue Yu Yingyong Shengwuxue (Genom. Appl. Biol.) 2020 ، 39 ، 2671-2682.
For more information:1950477648nn@gmail.com