فيروس حمى الخنازير الأفريقية (ASFV): المناعة وتطوير اللقاحات
Nov 30, 2023
فيروس حمى الخنازير الأفريقية (ASFV) هو العامل المسبب لمرض شديد العدوى حمى الخنازير الأفريقية (ASF)، والذي يمكن أن يؤدي إلى معدلات وفيات تصل إلى 100٪ في الخنازير المصابة بسلالات فتاكة [1]. تم تحديد الدورة الحرجية القديمة كمصدر لأول حالة تم الإبلاغ عنها من حمى الخنازير الأفريقية في شرق أفريقيا، مما تسبب في وفاة ما يقرب من 100٪ في الخنازير المنزلية المصابة بالحمى النزفية الحادة، وتم الإبلاغ عن حالات العدوى لاحقًا في معظم البلدان الأفريقية [2]. تم الإبلاغ عن أهم حدث عابر للقارات في جورجيا في عام 2007، مما أدى إلى حقبة انتقال جديدة بعد الأحداث اللاحقة في أوكرانيا (2012)، وبيلاروسيا (2013)، وليتوانيا (2014)، ورومانيا (2017)، والمجر (2018) [3] . في عام 2018، تم الإبلاغ عن وباء جديد في جمهورية الصين الشعبية، حيث سيطر بسرعة على معظم دول جنوب شرق آسيا ومقدونيا الشمالية؛ أعلنت تايلاند عن أولى حالات الإصابة بفيروس ASFV في عام 2022 [4،5]. على الرغم من انخفاض إمكاناتها الحيوانية ونطاق مضيفها المحدد، فقد أحدثت حمى الخنازير الأفريقية تأثيرًا اجتماعيًا واقتصاديًا كبيرًا، مما يهدد صناعة لحم الخنزير العالمية. وفقًا للمنظمة العالمية لصحة الحيوان، في الفترة من يناير 2020 إلى يناير 2022، تم الإبلاغ عن تفشي حمى الخنازير الأفريقية في 35 دولة أو منطقة حول العالم، بما في ذلك 4767 حالة (فقد 1,043,334 حيوانًا) في الخنازير الأليفة و18,262 حالة (فقد 29,970 حيوانًا) في البرية الخنازير [5].

فوائد سيستانش للرجال - تقوية جهاز المناعة
ASFV هو فيروس DNA مزدوج الجديلة كبير الحجم (dsDNA) ينتمي إلى جنس Asfivirus في عائلة Asfarvirida. يحتوي ASFV على جينوم DNA خطي يتراوح بين 170-190 كيلو بايت، مع أكثر من 150 إطار قراءة مفتوح (ORFs)؛ ومع ذلك، فإن الوظيفة المحددة لمعظم البروتينات الموجودة بداخله لا تزال غير واضحة [6]. وعلى الرغم من أن فيروس ASFV قد تسبب في أضرار جسيمة لصناعة الخنازير لمدة قرن من الزمان، إلا أن اللقاح المرخص له ليس متاحًا بعد. العامل الحاسم الذي يعيق تطوير لقاحات ASF فعالة وآمنة هو عدم وجود أدلة بحثية فيما يتعلق بإمراض ASFV والفهم الآلي العميق لاستراتيجيات ASFV للتهرب المناعي الفطري. ومع ذلك، فقد كشفت التطورات الحديثة في استراتيجيات التهرب المناعي الفطري هذه عن معرفة كبيرة يمكن أن تلعب دورًا مهمًا في تطوير لقاحات ASFV. يهدف هذا العدد الخاص إلى المساهمة في المعرفة الحالية المتعلقة بآليات التهرب المناعي التي يستخدمها فيروس ASFV للتسبب في العدوى وأساليب تطوير اللقاح التي من المحتمل أن تفيد المضيفين عند الإصابة الطبيعية اللاحقة.

فوائد سيستانش للرجال - تقوية جهاز المناعة
من وجهة نظر فيروس ASFV، من المهم منع الاستجابة المناعية الفطرية للمضيف خلال المرحلة المبكرة من العدوى. نظرًا لأن سلسلة إشارات cGAS-STING تلعب دورًا حاسمًا كمسار إشارات خلوية مهم ينشط مروجات إنترفيرون من النوع الأول (IFN) أو NF-κB عند عدوى فيروس الحمض النووي، فإن جينوم ASFV يشفر العديد من البروتينات التي تتداخل مع جزيئات مسار إشارات cGAS-STING [7]. على سبيل المثال، يتفاعل ASFV EP364R وC129R مع 20 3 0 - cGAMP ويمارسان نشاطهما النووي لقطع 2 0 3 0 - cGAMP، وبالتالي تقليل تنظيم الإشارات اللاحقة التي بدأتها cGAS [7]. علاوة على ذلك، يستحث ASFV MGF-505-7R التعبير عن البروتينات المرتبطة بالالتهام الذاتي ULK1 لتحلل STING [8]، ويتفاعل MGF505-11R مباشرة مع STING، وبالتالي يؤدي إلى تدهور STING من خلال البروتيزوم والليزوزوم والبلعمة الذاتية. الآليات [9]. تظهر الأبحاث الحديثة أن التفاعل المباشر لـ ASFV D117L (ص 17) مع STING يتداخل مع تفاعلات STING وTBK1 وIKK [10]. يستهدف ASFV DP96R TBK1 وIκB kinase beta (IKK) لتنظيم تعبير IFN-I سلبًا وتحريض إشارات NF-κB [11]، بينما يتفاعل ASFV MGF-505-7R مع IRF7 وTBK1، مما يؤدي إلى تدهور IRF7 بواسطة الالتهام الذاتي ، مسارات السيستين والبروتيزوم و TBK1 بواسطة المسار البروتيزومي [12]. يقوم ASFV I215L بتجنيد RNF138 لمنع انتشار TBK1 المرتبط بـ K63-، مما يمنع إنتاج IFN-I [13]. يتفاعل ASFV MGF360-11L مع TBK1 وIRF7، مما يؤدي إلى تحلل TBK1 وIRF7 من خلال مسارات السيستين واليوبيكويتين-البروتيزوم والبلعمة الذاتية [14]، بينما يقوم ASFV M1249L بقمع الفسفرة في TBK1 ويتفاعل مع IRF3، مما يؤدي بالتالي إلى تدهور IRF3 عن طريق المسار الليزوزومي [15]. المذكورة أعلاه هي بعض الجينات المثبطة للمناعة المميزة جيدًا والمشفرة في جينوم ASFV. لقد نجح العلماء في تحديد آليات عمل العديد من الجينات المثبطة للمناعة، وما زال هناك الكثير مما يجب اكتشافه. ولذلك، فإن هذه الجينات هي مرشحة مستهدفة محتملة لتطوير لقاحات حية موهنة.

فوائد سيستانش-تقوية جهاز المناعة
انقر هنا لعرض منتجات Cistanche Enhance Immunity
【اطلب المزيد】 البريد الإلكتروني: cindy.xue@wecistanche.com / تطبيق Whats: 0086 18599088692 / Wechat: 18599088692
كما ذكرنا سابقًا، كانت الطبيعة المعقدة لجينوم فيروس ASFV وجزيئات الفيروس هي العامل الرئيسي الذي أدى إلى تأخير تطوير لقاح ASFV؛ لذلك، على الرغم من الأبحاث المكثفة حول طرق اللقاحات المختلفة (الشكل 1)، لا يزال هناك نقص في مرشحي اللقاحات الواعدين. فشلت الاستعدادات المعطلة لفيروس ASF (ASFV) "Armenia08" مع Polyge أو Emulsigen-D في توفير الحماية ضد ASFV [16]. نظرًا لأن الخنازير المصابة لأول مرة بسلالات أقل ضراوة أثبتت أنها محمية ضد الفيروس الخبيث ذي الصلة [17]، فهناك احتمال أن تصبح اللقاحات الحية الموهنة هي الخيار الأكثر واعدة لتطوير اللقاح في إطار زمني قصير. تم تطوير اللقاحات الحية الموهنة عن طريق حذف جين واحد أو عدة جينات من جينوم ASFV. ومع ذلك، فإن الحماية باستخدام LAVs (اللقاحات الحية الموهنة) ترتبط ارتباطًا مباشرًا بمستوى التكرار ورقم الجين المناعي المعبر عنه. ولذلك، فإن LAVs، مع حذف جين واحد، قد توفر حماية أفضل بسبب التكاثر الأمثل ووجود الجينات المناعية. يمكن لـ ASFV-G-∆I177L حماية الخنازير من عزلة ASFV الخبيثة المنتشرة حاليًا في فيتنام، بفعالية مماثلة لتلك التي تم الإبلاغ عنها ضد سلالة جورجيا [18]. يمكن أن تسبب السلالات الموهنة حالات عدوى مزمنة بحمى الخنازير الأفريقية في الخنازير المحصنة، وذلك بسبب وجود الفوعة المتبقية وإمكانية العودة إلى الفوعة. ولذلك، يجب الحصول على أدلة تجريبية واسعة النطاق قبل الاستخدام الميداني. يظل ASFV-G-∆I177L مستقرًا وراثيًا ومخففًا ظاهريًا أثناء الارتداد المكون من خمسة مقاطع لدراسة الفوعة في الخنازير المحلية؛ علاوة على ذلك، ساعد انتقال الفيروس وتساقطه في التحقق من أن ASFV-G-∆I177L لقاح حي مخفف آمن [19]. منحت تجارب التطعيم باستخدام السلالات الموهنة ASFV-∆L7L-L11L حماية بنسبة 100% ضد التحدي المتماثل. بالإضافة إلى ذلك، تظهر الأدلة الحديثة أن LAV الذي تم تطويره عن طريق حذف جينات EP402R (CD2v) وA238L من سلالة النمط الجيني Arm/07/CBM/c2 من النمط الجيني II في خلايا COS-1 يمكن أن يوفر حماية بنسبة 100% ضد النمط الجيني الباجو الكوري الخبيث. السلالة الثانية [20]. ومع ذلك، هناك حاجة إلى مزيد من اختبارات السلامة والقدرة على الحماية المتبادلة لإنتاج اللقاحات التجارية للمركبات LAVs لأن ASFV يتكون من ازدواجية أو طفرات أو حذف تسلسلات معينة في جينوم الأنماط الجينية المختلفة، مما قد يؤدي إلى تغييرات في الفوعة [21].

فوائد سيستانش للرجال - تقوية جهاز المناعة
نظرًا لأنه من الضروري اكتشاف المستضدات الوقائية المحتملة، فقد تأخر تطوير لقاحات الوحدات الفرعية عن تطوير اللقاحات الحية الموهنة. توفر لقاحات الوحدة الفرعية مزايا السلامة مقارنة باللقاحات الموهنة؛ ومع ذلك، فإن غالبية المستضدات الواقية لفيروس ASFV المستخدمة في لقاحات الوحدات الفرعية المتوفرة حاليًا غير قادرة على توفير الحماية الكاملة [22]. من خلال استخدام عزل ASFV البرتغالي الخبيث OUR/T88/، أظهرت التحقيقات السابقة أن الخلايا التائية CD8+ تلعب دورًا حاسمًا في الحماية [23]. كمنصات بديلة للقاح ASF، تم دراسة لقاحات الحمض النووي واللقاحات الناقلة في الدراسات السابقة. من الناحية النظرية، يمكن إنتاج المستضدات داخل الخلايا وعبر MHC I، وهو أمر بالغ الأهمية لتنشيط الخلايا التائية CD8+، مما يجعل لقاحات الحمض النووي وناقلاته أكثر مناعة [24،25]. لا لقاحات الحمض النووي، ولا لقاحات النواقل، ولا استراتيجيات التحصين الأولية يمكنها توفير الحماية الكاملة. في بعض التحقيقات، ثبت أن البروتينات المؤتلفة لـ p30/CP204L وp54/E183L وCD2v/EP402R توفر حماية جزئية [26]. يمكن تحديد الحواتم المستضدية المحددة من خلال تحليل البرامج والتحقق من صحتها بالإضافة إلى التجارب ذات الصلة لتوجيه اختيار المستضد في تطوير لقاح ASF. أجرت العديد من فرق البحث مؤخرًا فحصًا واسع النطاق للقاحات الوحدات الفرعية لاكتشاف المستضدات الواقية وتحديد مجموعات المستضدات التي يمكنها منع تكاثر الفيروس بشكل فعال في الخنازير [27].
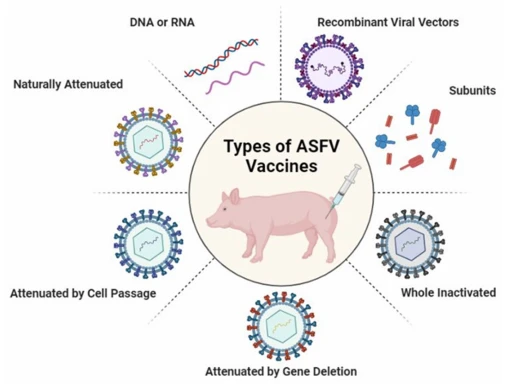
الشكل 1. اتجاهات التقدم في اللقاحات ضد فيروس ASFV. لقاحات ناقلات الفيروس المؤتلف، ولقاحات الوحدات الفرعية، ولقاحات فيروس ASF المعطل بالكامل، واللقاحات الموهنة المحذوفة من الجينات، واللقاحات المخففة بمرور الخلايا، واللقاحات الموهنة بشكل طبيعي، ولقاحات DNA أو RNA.
ولتطوير لقاحات حية موهنة واعدة على نطاق تجاري، يجب ضبط الجينات المحذوفة بعناية لتحقيق السلامة والفعالية المثلى. ولذلك، يجب تحديد الجينات ذات الارتباطات المناعية، بالإضافة إلى الخصائص الوقائية. علاوة على ذلك، من الضروري تحديد الجينات التي تشفر البروتينات المناعية التي يمكن تغييرها أو حذفها لإنشاء أهداف يمكنها التمييز بين تشخيص الحيوانات المصابة والحيوانات المحصنة (DIVA). هناك حاجة إلى مزيد من البحث لتحديد المستضدات الرئيسية المشاركة في تحفيز الخلايا الواقية واستجابات الأجسام المضادة لتطوير لقاحات الوحدة. سيساعد ذلك على تحسين فعالية اللقاحات وتحديد التنسيقات الجينية التي يمكن استخدامها لتطوير لقاح تجاري ضد فيروس ASFV [22]. باختصار، يقدم هذا العدد الخاص لمحة حالية عن حالة تطوير لقاح ASFV وآليات التهرب المناعي التي يستخدمها ASFV، والتي ستساعد في إنتاج لقاح واعد وفعال وآمن. على الرغم من صعوبة تطوير لقاح ASFV، إلا أن هناك الكثير مما يدعو إلى الأمل، مع وجود مجموعة من المنصات التكنولوجية الواعدة التي يتم تطبيقها حاليًا لحل هذا التحدي والعديد من المرشحين الذين يخضعون بالفعل للتحقيق التفصيلي، مما قد يشير إلى إمكانية الإنتاج قريبًا. تحقيقه على المستوى التجاري.

cistanche tubulosa-تحسين الجهاز المناعي
مراجع
1. موانجكرام، ي.؛ سوكماك، م. Wajjwalku، W. التحليل الجغرافي لفيروس حمى الخنازير الأفريقية بناءً على تسلسل الجينات p72. جينيت. مول. الدقة. 2015، 14، 4566-4574. [المرجع المتقاطع]
2. بلاورايت، دبليو؛ باركر، J.؛ بيرس، MA فيروس حمى الخنازير الأفريقية في القراد (Ornithodoros mou bata، Murray) تم جمعها من جحور الحيوانات في تنزانيا. طبيعة 1969، 221 ، 1071-1073. [CrossRef] [مجلات]
3. تشاو، د.؛ ليو، ر. تشانغ، العاشر. لي، ف. وانغ، J.؛ تشانغ، J.؛ ليو، X.؛ وانغ، ل.؛ تشانغ، J.؛ وو، العاشر. وآخرون. التكاثر والفوعة في الخنازير لأول فيروس حمى الخنازير الأفريقية المعزول في الصين. الظهور. تصيب الميكروبات. 2019، 8، 438-447. [CrossRef] [مجلات]
4. صن، إي؛ هوانغ، L.؛ تشانغ، العاشر. تشانغ، J.؛ شين، د.؛ تشانغ، Z .؛ وانغ، Z .؛ هوو، ه.؛ وانغ، دبليو؛ هوانغفو، ه.؛ وآخرون. النمط الجيني الأول ظهرت فيروسات حمى الخنازير الأفريقية في الخنازير المحلية في الصين وتسببت في عدوى مزمنة. الظهور. تصيب الميكروبات. 2021، 10، 2183-2193. [CrossRef] [مجلات]
5. وانغ، ز.؛ منظمة العفو الدولية، س. هوانغ، S.؛ أوو، ي.؛ جاو، Y.؛ تونغ، T.؛ فان، هـ. آلية الهروب المناعي وتقدم أبحاث اللقاحات لفيروس حمى الخنازير الأفريقية. اللقاحات 2022، 10، 344. [المرجع المتقاطع]
6. كاكيت، جي؛ سيكورا، م.؛ Werner، F. Transcriptome عرض لقاتل: فيروس حمى الخنازير الأفريقية. الكيمياء الحيوية. شركة نفط الجنوب. عبر. 2020، 48، 1569-1581. [المرجع المتقاطع]
7. دودانتينا، ن.؛ راناثونجا، L.؛ تشاثورانجا، WAG؛ ويراواردهانا، أ؛ تشا، جي دبليو؛ سوباسينغي، أ. جاماج، ن.؛ هالوانا، DK؛ كيم، Y.؛ جيونغ، دبليو؛ وآخرون. فيروس حمى الخنازير الأفريقية EP364R وC129R يستهدفان GMP-AMP الدوري لمنع مسار إشارات cGAS-STING. جي فيرول. 2022, 96, e0102222. [المرجع المتقاطع]
8. لي، د.؛ يانغ، دبليو؛ لي، ل. لي، ب. ما، Z .؛ تشانغ، J.؛ تشى، العاشر. رن، J.؛ رو، Y.؛ نيو، س. وآخرون. فيروس حمى الخنازير الأفريقية MGF-505-7R ينظم بشكل سلبي مسار الإشارات بوساطة cGAS-STING. جي إمونول. 2021، 206، 1844-1857. [المرجع المتقاطع]
9. يانغ، ك.؛ هوانغ، س. وانغ، ر. تسنغ، Y.؛ تشنغ، م. شيويه، Y.؛ شي، C.؛ أيها ل. يانغ، دبليو؛ جيانغ، Y.؛ وآخرون. يمنع فيروس حمى الخنازير الأفريقية MGF505-11R إنتاج الإنترفيرون من النوع الأول عن طريق التنظيم السلبي لمسار الإشارة الذي يتوسطه cGAS-STING. دكتور بيطري. ميكروبيول. 2021، 263، 109265. [المرجع المتقاطع]
10. تشنغ، دبليو؛ شيا، ن.؛ تشانغ، J.؛ تساو، س. جيانغ، س.؛ لو، J.؛ وانغ، ه.؛ تشن، ن.؛ تشانغ، س. مورينز، F .؛ وآخرون. يمنع البروتين الهيكلي لفيروس حمى الخنازير الأفريقية p17 مسار إشارات cGAS-STING من خلال التفاعل مع STING. أمام. إيمونول. 2022، 13، 941579. [المرجع المتقاطع]
11. وانغ، العاشر. وو، J.؛ وو، Y.؛ تشن، ه.؛ تشانغ، S.؛ لي، J.؛ شين، T.؛ جيا، ه.؛ هو، س؛ جيانغ، Y.؛ وآخرون. تثبيط مسار إشارات cGAS-STING-TBK1 بواسطة DP96R لـ ASFV China 2018/1. الكيمياء الحيوية. بيوفيس. الدقة. مشترك. 2018، 506، 437-443. [CrossRef] [مجلات]
12. يانغ، ك.؛ شيويه، Y.؛ نيو، T.؛ لي، العاشر. تشنغ، م. باو، م. زو، ب. شي، C.؛ وانغ، J.؛ يانغ، دبليو؛ وآخرون. تفاعل بروتين فيروس حمى الخنازير الأفريقية MGF505-7R مع IRF7 وTBK1 لمنع إنتاج الإنترفيرون من النوع الأول. الدقة الفيروسية. 2022، 322، 198931. [CrossRef] [PubMed]
13. هوانغ، ل.؛ شو، دبليو؛ ليو، ه.؛ شيويه، م. ليو، X.؛ تشانغ، ك. هو، ل.؛ لي، J.؛ ليو، X.؛ شيانغ، Z .؛ وآخرون. تصحيح: فيروس حمى الخنازير الأفريقية pI215L ينظم بشكل سلبي مسار إشارات cGAS-STING من خلال تجنيد RNF138 لمنع K63- التواجد المرتبط بـ TBK1. جي إمونول. 2022، 208، 1510-1511. [المرجع المتقاطع]
14. يانغ، ك.؛ شيويه، Y.؛ نيو، ه.؛ شي، C.؛ تشنغ، م. وانغ، J.؛ زو، ب. وانغ، J.؛ نيو، T.؛ باو، م. وآخرون. ينظم فيروس حمى الخنازير الأفريقية MGF360-11L سلبًا تثبيط إنتاج الإنترفيرون من النوع الأول بوساطة cGAS-STING. دكتور بيطري. الدقة. 2022، 53، 7. [المرجع المتقاطع]
15. كوي، س.؛ وانغ، Y.؛ جاو، X.؛ شين، T.؛ وانغ، العاشر. يو، ه.؛ تشن، س. جيانغ، Y.؛ تشن، س. جيانغ، ف؛ وآخرون. يعمل بروتين فيروس حمى الخنازير الأفريقية M1249L على استعداء إنتاج الإنترفيرون من النوع الأول عن طريق تثبيط الفسفرة في TBK1 وتحلل IRF3. الدقة الفيروسية. 2022، 319، 198872. [CrossRef] [PubMed]
16. بلوم، س.؛ غابرييل، C .؛ Beer، M. المواد المساعدة الحديثة لا تعزز فعالية تحضير لقاح فيروس حمى الخنازير الأفريقية المعطل. لقاح 2014، 32، 3879-3882. [المرجع المتقاطع]
17. ديتراي، دي استمرار تفير الدم والمناعة في حمى الخنازير الأفريقية. أكون. جي بيطري. الدقة. 1957، 18، 811-816.
18. تران، XH؛ لو، طالبان الباكستانية. نجوين، QH؛ افعل، تي تي؛ نجوين، في دي؛ مثلي الجنس، الفريق الاستشاري. بوركا، إم في؛ Gladue، DP، المرشح لقاح فيروس حمى الخنازير الأفريقية ASFV-G-∆I177L يحمي بكفاءة سلالات الخنازير الأوروبية والمحلية ضد سلالة الحقل الفيتنامية المنتشرة. العابرة. الظهور. ديس. 2022, 69, e497–e504. [المرجع المتقاطع]
19. تران، XH؛ فونج، LTT؛ هوي ، NQ. ثوي، دي تي؛ نجوين، في دي؛ كوانج، PH؛ نغون، كيو في؛ راي، أ. مثلي الجنس، الفريق الاستشاري. جلادو، دي بي؛ وآخرون. تقييم ملف السلامة الخاص بمرشح لقاح ASFV ASFV-G-∆I177L. الفيروسات 2022، 14، 896. [المرجع المتقاطع]
20. بيريز نونيز، د.؛ سونوو، SY؛ غارسيا بيلمونت، ر.؛ كيم، سي. فيجارا-أستيليرو، جي؛ رييرا، إي. كيم، دي إم؛ جيونج، J.؛ تارك، د.؛ كو، Y.-S.؛ وآخرون. تم تخفيف ذراع فيروس حمى الخنازير الأفريقية المؤتلف/07/CBM/c2 الذي يفتقر إلى CD2v وA238L ويحمي الخنازير من سلالة الباجو الكورية الخبيثة. اللقاحات 2022، 10، 1992. [المرجع المتقاطع]
21. باو، ج.؛ وانغ، س. لين، ب. ليو، C.؛ لي، ل. وو، العاشر. تشي، T.؛ شو، T.؛ قه، S.؛ ليو، Y.؛ وآخرون. مقارنة الجينوم لسلالة فيروس حمى الخنازير الأفريقية China/2018/AnhuiXCGQ وسلالات النمط الجيني p72 الأوروبية ذات الصلة. العابرة. الظهور. الأمراض. 2019، 66، 1167-1176. [CrossRef] [مجلات]
22. ديكسون، LK. ستال، ك. جوري، ف. فيال، ل.؛ فايفر، DU حمى الخنازير الأفريقية علم الأوبئة والسيطرة عليها. آنو. القس أنيم. بيوسسي. 2020، 8، 221-246. [المرجع المتقاطع]
23. أورا، كال؛ دينير، MS؛ تاكاماتسو، ه.؛ Parkhouse، RME في الجسم الحي، يؤدي استنفاد الخلايا الليمفاوية CD8+ T إلى إلغاء المناعة الوقائية لفيروس حمى الخنازير الأفريقية. جيه الجنرال فيرول. 2005، 86، 2445-2450. [CrossRef] [مجلات]
24. لوبيرا مدريد، ج.؛ أوسوريو، جي. يا.؛ شيانغ، Z .؛ آدامز، إل جي؛ لافلين، RC؛ موانجى، دبليو؛ سوبرامانيا، S .؛ نيلان، J.؛ الفرامل، د.؛ وآخرون. السلامة والمناعة لللقاحات المشتقة من خلايا الثدييات والمعدلة في أنقرة تنقل مستضدات الوحدة الفرعية لحمى الخنازير الأفريقية في الخنازير. دكتور بيطري. إيمونول. مناعي. 2017، 185، 20-33. [المرجع المتقاطع]
25. سونوو، SY؛ بيريز نونيز، د.؛ موروزوف، أنا. سانشيز، على سبيل المثال؛ جودرو، NN؛ تروجيلو، دينار؛ مور، ل.؛ نوجال، م.؛ مادن، د.؛ أوربانياك، ك. وآخرون. استراتيجية التطعيم بالحمض النووي والبروتين لا تحمي من التحدي المتمثل في سلالة فيروس حمى الخنازير الأفريقية في أرمينيا 2007. اللقاحات 2019، 7، 12. [CrossRef] [PubMed]
26. أرياس، م. دي لا توري، أ؛ ديكسون، ل.؛ غالاردو، C .؛ جوري، ف. لادومادا، أ؛ مارتينز، C.؛ باركهاوس، آر إم؛ ريفيلا، Y.؛ رودريغيز، فج. وآخرون. مقاربات ووجهات نظر لتطوير لقاحات فيروس حمى الخنازير الأفريقية. اللقاحات 2017، 5، 35. [المرجع المتقاطع]
27. كاديناس فرنانديز، إي؛ سانشيز فيزكاينو، JM؛ كوسوفسكا، أ. ريفيرا، ب. مايورال أليغري، ف؛ رودريغيز بيرتوس، أ؛ ياو، J.؛ براي، J.؛ لوخاندوالا، س. موانجى، دبليو؛ وآخرون. كوكتيل مستضدات فيروس حمى الخنازير الأفريقية المنتقلة بالفيروسات الغدية ليس وقائيًا ضد الفيروس الخبيث Arm07 المعزول في الخنازير البرية الأوراسية. مسببات الأمراض 2020، 9، 171. [CrossRef]